viernes, 17 de julio de 2015

Capítulo 5.- El Replicador Activo de la Línea Germinal (84)

Como he dicho, la distinción activo/pasivo trasciende la distinción de línea germinal/sin-salida. Cualquiera de las cuatro combinaciones son concebibles. Particular interés despierta una de las cuatro, el replicador activo de la línea germinal, ya que es, en mi opinión, el 'optimon', la unidad en beneficio de la cual existen adaptaciones. La razón por la que los replicadores activos de la línea germinal son unidades importantes es que, en cualquier parte del universo que se encuentren, es probable que se conviertan en la base para la selección natural, y por lo tanto para la evolución. Si existen replicadores que estén activos, las variantes de ellos con ciertos efectos fenotípicos suelen sobre-replicar a los que tienen otros efectos fenotípicos. Si, además, son replicadores de la línea germinal, estos cambios en la frecuencia relativa pueden tener, a largo plazo, un impacto evolutivo. El mundo tiende automáticamente a poblarse por los replicadores de la línea germinal cuyos efectos fenotípicos activos son los que aseguren su replicación exitosa. Son estos efectos fenotípicos los que vemos como adaptaciones para la supervivencia. Cuando nos preguntamos qué supervivientes se aseguran la adaptación, la respuesta fundamental tiene que ser no el grupo, ni el organismo individual, sino los propios replicadores pertinentes. 

     He resumido previamente las cualidades de un replicador exitoso 'en un lema que recuerda la Revolución Francesa: Longevidad, Fecundidad, Fidelidad' (Dawkins 1978a). Hull (1980b) explica el punto con claridad.
    "Los replicantes no necesitan durar siempre. Sólo necesitan durar el tiempo suficiente para producir replicadores adicionales [fecundidad] que conserven su estructura en gran parte intacta [fidelidad]. La longevidad relevante se refiere a la retención de la estructura a través de la descendencia. Algunas entidades, aunque estructuralmente similares, no son copias porque no están relacionadas por descendencia. Por ejemplo, aunque los átomos de oro son estructuralmente similares, no son copias los unos de los otros, porque los átomos de oro no dan lugar a otros átomos de oro. Por el contrario, una gran molécula puede descomponerse en moléculas cada vez más pequeñas en cuanto se separan sus enlaces cuaternarios, terciarios y secundarios. Aunque la descendencia está presente, estas moléculas cada vez más pequeñas no pueden considerarse como copias porque carecen de la similitud estructural requerida."

viernes, 10 de julio de 2015

Capítulo 5.- El Replicador Activo de la Línea Germinal (83)

Yo defino un replicador como cualquier cosa en el universo de la cual se hacen copias. Ejemplos son una molécula de ADN, y una hoja de papel que se haya fotocopiado. Los replicadores pueden clasificarse de dos formas. Pueden ser 'activos' o 'pasivos', y, trascendiendo esta clasificación, pueden ser replicadores de 'línea germinal' o 'sin salida'. 

     Un replicador activo es cualquier replicador cuya naturaleza tiene cierta influencia sobre su probabilidad de ser copiado. Por ejemplo, una molécula de ADN, a través de la síntesis de proteínas, ejerce efectos fenotípicos que influyen en si es copiada: de esto trata la selección natural. Un replicador pasivo es un replicador cuya naturaleza no tiene ninguna influencia sobre su probabilidad de ser copiado. A primera vista, una hoja de papel fotocopiada parece ser un ejemplo, pero algunos podrían argumentar que su naturaleza sí que influye en si es copiada, por lo que es activa: los seres humanos son más propensos a fotocopiar unas hojas de papel que otras, debido a lo que está escrito en ellas, y estos ejemplares son, a su vez, relativamente propensos a ser copiados de nuevo. Una sección de ADN que nunca se transcribe podría ser un auténtico ejemplo de un replicador pasivo (pero véase el capítulo 9 sobre el ADN egoísta). 

Amoeba proteus. Fuente.


     Un replicador de línea germinal (que puede ser activo o pasivo) es un replicador que es el ancestro potencial de una línea indefinidamente larga de replicadores descendientes. Un gen en un gameto es un replicador de la línea germinal. Así es un gen en una de las células de la línea germinal de un cuerpo, un ancestro mitótico directo de un gameto. Así es cualquier gen en Amoeba proteus. Así es una molécula de ARN en uno de los tubos de ensayo de Orgel (1979). Un replicador sin salida (que también puede ser activo o pasivo) es un replicador que puede ser copiado un número finito de veces, dando lugar a una cadena corta de descendientes, pero que definitivamente no es el ancestro potencial de una línea  indefinidamente larga de descendientes. La mayor parte de las moléculas de ADN en nuestro cuerpo son replicadores sin salida. Pueden ser los ancestros de algunas decenas de generaciones de replicación mitótica, pero definitivamente no serán antepasados ​​a largo plazo. 


 leaf cuttings
Hojas cortadas y plantadas de Streptocarpus. Fuente.

     Una molécula de ADN en la línea germinal de un individuo que muera joven, o que de otra manera falle en reproducirse, no debería ser llamada un replicador sin salida. Tales líneas germinales son, como resultan ser, terminales. Fallan en lo que metafóricamente puede llamarse su aspiración a la inmortalidad. Un fallo diferencial de este tipo es lo que entendemos por selección natural. Pero tanto si tiene éxito en la práctica o no, cualquier replicador de la línea germinal es potencialmente inmortal. Aspira a la inmortalidad, pero en la práctica está en peligro de fracaso. Todas las moléculas de ADN de las obreras de insectos sociales totalmente estériles son, sin embargo, verdaderos replicadores sin salida. Ni siquiera aspiran a replicarse indefinidamente. Las obreras carecen de una línea germinal, no por una cuestión de mala suerte, sino por una cuestión de diseño. En este sentido, se parecen a las células hepáticas humanas más que a las espermatogonias de un ser humano que sea célibe. Puede haber {84} casos intermedios extraños, por ejemplo, la obrera 'estéril' que se convierte en facultativamente fértil si su madre muere, y la hoja de Streptocarpus que no se espera que propague una nueva planta, pero que puede hacerlo si se planta como un esqueje. Pero esto se está poniendo teológico: no nos preocupemos de cuántos ángeles precisamente pueden bailar en la cabeza de un alfiler.

viernes, 3 de julio de 2015

Capítulo 5.- El Replicador Activo de la Línea Germinal (82)

Gould (1977b) establece lo que, a primera vista, parece ser el problema:
    La identificación de los individuos como la unidad de selección es un tema central en el pensamiento de Darwin ... Los individuos son la unidad de selección; la lucha por la existencia es un asunto entre individuos... En los últimos quince años, los desafíos al enfoque de Darwin sobre los individuos han venido de arriba y de abajo. Desde arriba, el biólogo escocés V.C. Wynne-Edwards levantó ampollas ortodoxas hace quince años, argumentando que los grupos, no los individuos, son unidades de selección, por lo menos para la evolución del comportamiento social. Desde abajo, el biólogo inglés Richard Dawkins me ha puesto recientemente los pelos de punta con su afirmación de que los genes en sí son unidades de selección, y los individuos simplemente sus receptáculos temporales.

Gould invoca la idea de una jerarquía de niveles de la organización de la vida. Él se ve como encaramado en un peldaño intermedio de una escalera, con seleccionistas de grupo arriba y seleccionistas de genes abajo. El presente capítulo y el siguiente mostrarán que este tipo de análisis es falso. Hay, por supuesto, una jerarquía de niveles de organización biológica (véase el capítulo siguiente), pero Gould la está aplicando de forma incorrecta. El conflicto convencional entre selección de grupo y selección individual es diferente en categoría de la aparente disputa entre selección individual y selección de genes. Es erróneo pensar en las tres como ordenadas en una escalera
unidimensional, de modo que palabras como 'arriba' y 'abajo' tienen un significado transitivo. Demostraré que la bien aireada disputa entre grupo e individuo tiene que ver con lo que llamaré la 'selección del vehículo', y puede ser considerado como un conflicto biológico factual acerca de las unidades de selección natural. El ataque 'desde abajo', por el contrario, es en realidad una discusión sobre lo que deberíamos querer decir cuando hablamos de una unidad de selección natural. 

     Para anticipar la conclusión de estos dos capítulos, hay dos maneras en las que podemos caracterizar la selección natural. Ambas son correctas; simplemente se centran en diferentes aspectos de un mismo proceso. La evolución es la manifestación externa y visible de la supervivencia diferencial de replicadores alternativos (Dawkins 1978a). Los genes son replicadores; los organismos y grupos de organismos es mejor que no sean considerados como replicadores; son los vehículos en los que viajan los replicadores. La selección del replicador es el proceso por el cual algunos replicadores sobreviven a expensas de otros replicadores. La selección del vehículo es el proceso por el que algunos vehículos tienen más éxito que otros vehículos para garantizar la supervivencia de sus replicadores. La controversia acerca de la selección de grupo frente a la selección individual es una controversia acerca de las afirmaciones rivales de dos tipos sugeridos de vehículo. La controversia acerca de la selección de genes en comparación con la selección individual (o grupal) es una controversia acerca de si, cuando hablamos de una unidad de selección, deberíamos querer decir un vehículo en sí, o un replicador. El filósofo D.L. Hull (1980 a, b) se ha dado  bastante cuenta de esta {83} cuestión, pero, después de meditarlo un poco, prefiero persistir en mi propia terminología en lugar de adoptar sus 'interactores' y 'evolucionadores'.

viernes, 26 de junio de 2015

Capítulo 5.- El Replicador Activo de la Línea Germinal (81)

5.- El replicador Activo de la Línea Germinal

En 1957, Beezer argumentó que el gen no podía seguir siendo un concepto de algo único, unitario. Lo dividió en tres: el mutón era la unidad mínima de cambio mutacional; el recón era la unidad mínima de recombinación; y el cistrón se definió de una manera que era sólo directamente aplicable  a los microorganismos, pero era efectivamente equivalente a la unidad responsable de la síntesis de una cadena polipeptídica. He sugerido la adición de una cuarta unidad, el optimón, la unidad de selección natural (Dawkins 1978b). Independientemente, E. Mayr (comunicación personal) acuñó el término 'selectón' para el mismo propósito. El optimón (o selectón) es el 'algo' a lo que nos referimos cuando hablamos de una adaptación 'para el bien de algo'. La pregunta es, ¿qué es ese algo; ¿qué es el optimón?

     La cuestión de cuál es la 'unidad de selección' ha sido objeto de debate de tanto en tanto en la literatura, tanto de la biología (Wynne-Edwards 1962; Williams 1966; Lewontin 1970, a; Leigh 1977; Dawkins 1978a; Alexander y Borgia 1978; Wright 1980) como de la filosofía (1980a Hull, b; Wimsatt en preparación). A primera vista, parece un argumento bastante inútilmente teológico. Hull, de hecho, lo considera explícitamente como 'metafísica' (aunque no peor que eso). Tengo que justificar mi interés en él. ¿Por qué es importante lo que consideremos como la unidad de selección? Hay varias razones, pero daré sólo una. Estoy de acuerdo con Williams (1966), Curio (1973) y otros en que hay una necesidad de desarrollar una ciencia seria de la
adaptación -teleonomía, como Pittendrigh (1958) la llamó. El problema teórico central de la teleonomía será el de la naturaleza de la entidad en cuyo nombre puede decirse que existen adaptaciones. ¿Son para el beneficio del organismo individual, para el beneficio del grupo o la especie de la que es miembro, o en beneficio de alguna unidad más pequeña dentro del organismo individual? Como ya se puso de relieve en el capítulo 3, esto es realmente importante. Las adaptaciones para el bien de un grupo se verán bastante diferentes de las adaptaciones para el bien de un individuo. {82}

viernes, 19 de junio de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (y 80)

Drongo negro dándose un baño de hormigas en la India. Fuente.
Este capítulo tenía la intención de iniciar el proceso para socavar la confianza del lector en el teorema central del organismo egoísta.Ese teorema indica que se espera que los animales individuales trabajen por el bien de su propia aptitud inclusiva, por el bien de las copias de sus propios genes. El capítulo ha mostrado que los animales son muy propensos a trabajar dura y vigorosamente por el bien de los genes de otro individuo, y en detrimento de los suyos. Esto no es necesariamente sólo una desviación temporal del teorema central, un breve interludio de la explotación manipuladora antes de que la contraselección en el linaje víctima reequilibre la balanza. He sugerido que asimetrías fundamentales como el principio de vida/cena, y el efecto enemigo escaso, se ocuparán de que muchas carreras armamentistas alcancen un estado estable en el que los animales de un bando trabajen permanentemente en beneficio de los animales del otro bando, y en su propio perjuicio; trabajar duro, con energía, sin motivo, en contra de sus propios intereses genéticos. Cuando vemos a los miembros de una especie comportándose consistentemente de una manera determinada, el 'baño de hormigas' en aves o lo que sea, tenemos tendencia a rascarnos la cabeza y preguntarnos cómo el comportamiento beneficia la aptitud inclusiva de los animales. ¿Cómo beneficia a un pájaro que las hormigas correteen a lo largo de sus plumas? ¿Se usan las hormigas para limpiarse de parásitos, o qué? ¡La conclusión de este capítulo es que podríamos en cambio preguntar qué aptitud inclusiva está beneficiando esa conducta! ¿es el propio animal, o algún manipulador al acecho entre bastidores? En el caso del 'baño de hormigas', parece razonable especular acerca de ventajas para el ave, ¡pero tal vez deberíamos dar por lo menos una mirada de reojo a la posibilidad de que sea una adaptación para el bien de las hormigas!

viernes, 12 de junio de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (79)

¿Muestran los machos de Trypoxylon politum algún comportamiento que pudiéramos sospechar que fuera un intento de tal manipulación, por ejemplo que se comporten como si trataran de prolongar la puesta de huevos?Brockmann describe un patrón de comportamiento curioso llamado 'sujeción'. Éste se ve alternando con la copulación durante los últimos minutos antes de que la hembra ponga su huevo. Además de unas breves cópulas durante toda la fase de provisión del nido, el final de la puesta de huevos y del sellado del nido es anunciado por un prolongado encuentro con repetidas cópulas, que dura varios minutos. Primero la hembra va de cabeza al nido de barro vertical en forma de órgano de tubo, y empuja su cabeza hacia el grupo de arañas paralizadas alojadas en la parte superior del nido. Su abdomen encara la entrada en la parte inferior del nido, y en esta posición el macho copula con ella. La hembra entonces se gira para quedar cabeza abajo hacia fuera del nido, y sondea las arañas con la punta de su abdomen, como si fuera a poner un huevo. Por su parte, el macho 'sujeta' la cabeza de ella entre sus patas delanteras durante aproximadamente medio minuto, agarra sus antenas y tira de ella hacia abajo, lejos de las arañas. Ella se da la vuelta y copulan nuevamente. La hembra otra vez se gira a sondear las arañas con su abdomen, el macho sostiene la cabeza de nuevo y la arrastra hacia abajo. Todo el ciclo se repite una media docena de veces. Finalmente, después de un especialmente largo encuentro de sujeción de cabeza, la hembra pone su huevo. 
HTrypoxylon politum-2@Nest
Hembra de Trypoxylon politum entrando en el nido, mientras el macho espera en la entrada. Fuente.

     Una vez se pone el huevo, el sexo está determinado. Ya hemos considerado la posibilidad hipotética de que las hormigas obreras manipulen el sistema nervioso de su madre, forzándola a cambiar su decisión de fertilizar en su interés genético. La sugerencia de Brockmann es que los machos de Trypoxylon politum podrían intentar una subversión similar, y que el comportamiento de sujetar la cabeza y arrastrarla puede ser una manifestación de su técnica de manipulación. Cuando el macho se apodera de las antenas de la hembra y la arrastra lejos de las arañas que está sondeando con su abdomen, ¿se la obliga a un aplazamiento de la puesta de huevos como un medio para aumentar la probabilidad de que el óvulo sea fertilizado en el oviducto? La verosimilitud de esta sugerencia podría depender de dónde se encuentra exactamente el huevo en el cuerpo de la hembra durante el tiempo de sujeción  ¿O, en realidad, como el Dr. WD Hamilton nos ha sugerido, el macho está chantajeando a la hembra, amenazándola con arrancarle la cabeza de un bocado a menos que posponga la puesta de huevos hasta después de la cópula? Tal vez él gana por repetidas cópulas, simplemente inundando pasajes internos de la hembra con su esperma, aumentando así la probabilidad de que el huevo se encuentre con un espermatozoide que no haya sido liberado deliberadamente de la espermateca por la hembra. Es evidente que éstas son sólo sugerencias para futuras {80} investigaciones, y Brockmann, junto con Grafen y otros, las están siguiendo. Los indicios preliminares, entiendo, no apoyan la hipótesis de que los machos realmente tengan éxito en ejercer el poder sobre la proporción de sexos .

viernes, 5 de junio de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (78)

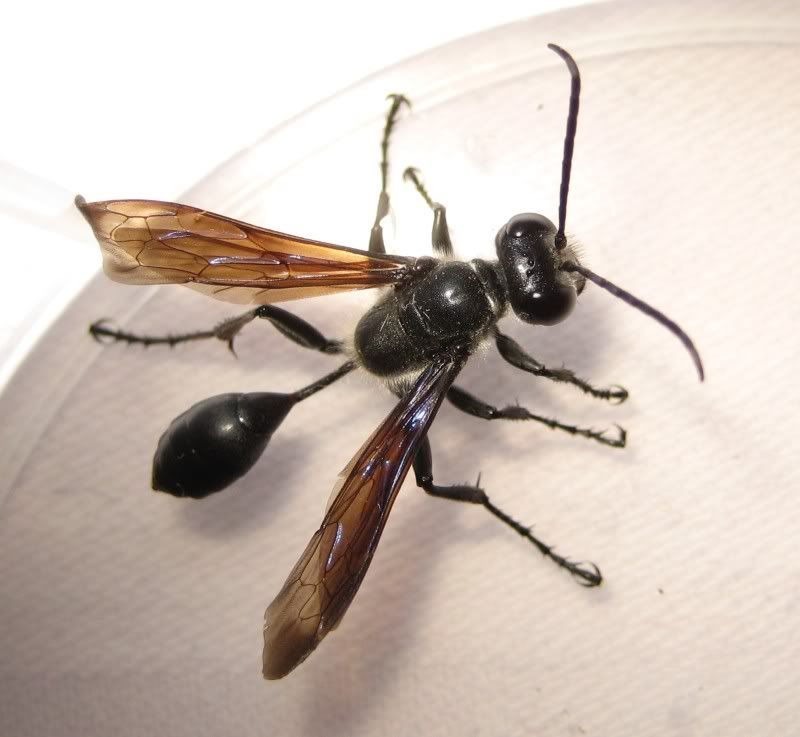
Trypoxylon politum. Fuente
Por ejemplo, podemos centrar nuestra atención de la investigación en el momento exacto en que una reina decide si va a fertilizar un óvulo dado o no. Es plausible suponer que, dado que el evento tiene lugar en el propio cuerpo de la reina, es probable que esa {78} decisión particular se  haya seleccionado para beneficiar los genes de la reina. Por plausible que sea, es precisamente este tipo de suposición lo que la doctrina del fenotipo extendido va a poner en cuestión. Por el momento, nos limitamos a señalar la posibilidad de que las obreras pueden manipular el sistema nervioso de la reina, a través de feromonas u otros medios, con el fin de alterar su comportamiento en favor de sus intereses genéticos. Del mismo modo, son los nervios y músculos de la obrera los que son inmediatamente responsables de alimentar a las larvas, con lo que no estamos, por tanto, necesariamente autorizados a suponer que los miembros de las obreras se mueven sólo por los intereses de los genes de las obreras. Como es bien sabido, hay un flujo de tráfico masivo de feromonas de la reina a las obreras, y es fácil imaginar una poderosa manipulación del comportamiento de las obreras por las reinas. El asunto es que cada hipótesis sobre el poder que pudiéramos enunciar produce predicciones comprobables acerca de la proporción de sexos, y es esta perspectiva la que que tenemos que agradecer a Trivers y Hare, no a su particular modelo cuyas predicciones comprobaron. Incluso cabe la posibilidad, en algunos himenópteros, de que los machos puedan ejercer poder. Brockmann (1980) está realizando un estudio intensivo de las avispas moldeadoras de barro Trypoxylon politum. Estas son 'solitarias' (a diferencia de las avispas verdaderamente sociales), pero no siempre se encuentran completamente solas. Como en otros esfécidos, cada hembra construye su propio nido (en este caso con barro), lo provisiona con presas paralizadas (arañas), pone un huevo en la presa, y luego sella el nido y comienza de nuevo el ciclo. En muchos himenópteros, la hembra lleva el suministro de esperma a partir de un breve período de inseminación temprano en la vida. Sin embargo, las Trypoxylon politum hembras copulan frecuentemente durante la vida adulta. Los machos frecuentan los nidos femeninos, sin perder ninguna oportunidad de copular con la hembra en cada uno de sus regresos al nido. Un macho puede pasar horas de una vez aposentado pasivamente en el nido, probablemente ayudando a protegerlo contra parásitos, y lucha con otros machos que intentan entrar. Entonces, a diferencia de la mayoría de himenópteros macho, la Trypoxylon politum masculina está presente en la escena de la acción. ¿No podría, por tanto, estar potencialmente en condiciones de influir en la proporción de sexos, de la forma que se ha postulado en las hormigas obreras?
Nidos de Trypoxylon politum seccionados. Fuente.


      Si los machos ejercieran el poder, ¿qué consecuencias esperaríamos? Puesto que un macho pasa todos sus genes a sus hijas, y ninguno a los hijos de su pareja, se verían favorecidos los genes tendentes a hacer que los machos prefieran hijas en vez de hijos. Si los machos ejercieran un poder total, determinando por completo la proporción de sexos de las crías de sus parejas, la consecuencia sería curiosa. No nacería ningún macho en la primera generación de poder masculino. Como resultado, en el año siguiente todos los huevos puestos no serían fecundados, así que serían masculinos. Por consiguiente, la población oscilaría violentamente y entonces se extinguiría (Hamilton 1967). Si los machos ejercieran una cantidad limitada de poder, sucederían consecuencias menos drásticas, y la situación sería formalmente análoga a la de la transmisión del cromosoma X en el sistema normal de genética diploide (Capítulo 8). En cualquier caso, un himenóptero macho, si se encontrara en condiciones de influir en la proporción de sexos de los hijos de su pareja, se esperaría que tratara de hacerlo en una dirección femenina. {79} Podría hacerlo tratando de influir en la decisión de su pareja de la conveniencia de liberar el esperma desde su espermateca. No es evidente cómo podría hacerlo en realidad, pero se sabe que las reinas de abejas tardan más en la puesta de un óvulo femenino que en uno masculino, tal vez usando el tiempo extra en lograr la fertilización. Sería interesante probar experimentalmente a interrumpir una reina en medio de la puesta de huevos, para ver si el retraso aumenta la probabilidad de que emergiera un óvulo femenino .

viernes, 29 de mayo de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (77)

Grafen, como Bulmer y Taylor (en preparación), ha explorado las consecuencias de asumir que el poder se divide así: la reina tiene el poder absoluto sobre el sexo de los huevos que ella pone, las obreras tienen poder absoluto sobre la alimentación de las larvas. Las obreras pueden así determinar cuántos de los óvulos femeninos disponibles deberán convertirse en reinas y cuántos en obreras. Tienen el poder de matar de hambre a los jóvenes de uno u otro sexo, pero tienen que trabajar dentro de las limitaciones de lo que la reina les da en forma de huevos. Las reinas tienen el poder de poner sus huevos en cualquier proporción de sexos que elijan, incluyendo la retención, total, de los huevos de uno u otro sexo. Pero, una vez puestos, los huevos están a merced de las obreras. Una reina puede, por ejemplo, jugar a la estrategia (en el sentido de la teoría de juegos) de poner solamente huevos masculinos en un año determinado. Reacias como podríamos esperar que fueran, las obreras no tienen más remedio que criar a sus hermanos. La reina, en este caso, puede anticiparse a ciertas estrategias de las obreras, tales como la 'preferencia a alimentar a las hermanas', simplemente porque ella 'juega' primero. Pero hay otras cosas que las obreras pueden hacer. 

     Usando la teoría de juegos, Grafen muestra que sólo ciertas estrategias de la reina son respuestas evolutivamente estables a las estrategias particulares de las obreras, y sólo ciertas estrategias de las  obreras son respuestas evolutivamente estables a las estrategias particulares de la reina. La pregunta interesante es: ¿Cuáles son las combinaciones evolutivamente estables de entre las estrategias de las obreras y la reina? Resulta que hay más de una respuesta, y no puede haber un máximo de tres estados evolutivamente estables para un determinado conjunto de parámetros. Las conclusiones particulares de Grafen no me conciernen aquí, aunque he de comentar que son curiosamente contrarias a la intuición. Lo que me concierne es que el estado evolutivamente estable de la población modelo depende de las asunciones que hagamos sobre el poder. Trivers y Hare contrastan dos posibles supuestos absolutos (potencia absoluta de la obrera frente a potencia absoluta de la reina). Grafen investigó una división plausible del poder (las reinas tienen el poder sobre los huevos, las obreras sobre la alimentación de las larvas). Pero, como ya he señalado, se podrían hacer muchas otras suposiciones sobre el poder. Cada supuesto genera diferentes predicciones sobre las proporciones de sexos evolutivamente estables, y el testar las predicciones, por tanto,  puede ser considerado como un aporte de pruebas sobre la disposición de poder en el nido.

viernes, 22 de mayo de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (76)

A primera vista, podría parecer que el argumento de Charnov no se aplica a los animales haplodiploides, y eso sería una lástima, ya que la mayoría de los insectos sociales son haplodiploides. Pero esta visión es errónea. El mismo Charnov lo muestra para el supuesto especial de que la población tenga una proporción de sexos no sesgada, en cuyo caso, incluso en las especies haplodiploides las hembras son indiferentes entre criar hermanos (r - la media de 3/4 y 1/4) y criar descendientes (r = 1/2 ). Pero Craig (1980) y Grafen (en preparación) muestran de forma independiente que Charnov ni siquiera tiene que asumir una proporción de sexos no sesgada. La potencial obrera aún es indiferente entre la crianza de sus hermanos y la crianza de sus hijos, en cualquier concebible proporción de sexos de la población. Así, supongamos que la proporción de sexos de la población tiene un sesgo femenino, {76} incluso supongamos que se ajusta a la predicción de 3:1 de Trivers y Hare. Puesto que la obrera está más estrechamente relacionada con su hermana que con su hermano o con su descendencia de uno u otro sexo, podría parecer que 'preferiría' críar hermanos en vez de hijos, dada una proporción de sexos femeninamente sesgada: ¿no está ganando sobre todo valiosas hermanas (además de sólo unos pocos hermanos relativamente sin valor) cuando opta por los hermanos? Pero este razonamiento deja de lado el relativamente gran valor reproductivo de los machos en una población, como consecuencia de su escasez. La obrera puede no estar estrechamente emparentada con cada uno de sus hermanos, pero si los machos son poco frecuentes en la población en su conjunto, cada uno de esos hermanos es correspondientemente muy probable que sea un antepasado de las generaciones futuras. 

     Las matemáticas confirman que la conclusión de Charnov es aún más general de lo que sugirió. En ambas especies diploides y haplodiploides, en cualquier proporción de sexos de la población, para una hembra individual es teóricamente indiferente si ella misma cría hermanos menores o sus hijos. Para ella, sin embargo, no es indiferente si su descendencia cría a sus propios hijos o a sus hermanos: ella prefiere que críen a sus hermanos (su descendencia) en vez de a la descendencia de sus hijos (sus nietos). Por tanto, si hay alguna cuestión de manipulación en esta situación, la manipulación parental sobre los hijos es más probable que la manipulación filial sobre los padres. 

     Podría parecer que las conclusiones de Charnov, Craig y Grafen contradicen radicalmente las de Trivers y Hare acerca de la proporción de sexos en los himenópteros sociales. La afirmación de que, en cualquier proporción de sexos, un himenóptero hembra es indiferente entre la crianza de sus hermanos y  la crianza de los hijos, suena equivalente a decir que también es indiferente a cuál es la proporción de sexos en su nido. Pero esto no es así. Sigue siendo cierto que, dado el supuesto de control de las obreras sobre la inversión en reproductores masculinos y femeninos, la proporción de sexos evolutivamente estable resultante no será necesariamente la misma que la proporción de sexos evolutivamente estable dado el control de la reina. En este sentido, una obrera no es indiferente a la proporción de sexos: ella también puede trabajar bien para cambiar la proporción de sexos lejos de lo que la reina está tratando de lograr. 

El análisis de Trivers y Hare sobre la naturaleza exacta del conflicto entre la reina y las obreras en la proporción de sexos se puede extender de forma que ilumine aún más el concepto de la manipulación (por ejemplo, Oster y Wilson 1978). La siguiente consideración se deriva de Grafen (en preparación). No voy a anticipar sus conclusiones al detalle, pero quiero enfatizar un principio que es explícito en su análisis, así como implícito en el de Trivers y Hare. La cuestión no es '¿Se ha alcanzado con éxito la "mejor" proporción de sexos?'.  Al contrario, hacemos un supuesto de trabajo de que la selección natural ha producido un resultado, dadas algunas limitaciones, y luego preguntamos cuáles son esas restricciones (véase el Capítulo 3). En el presente caso, seguimos a Trivers y Hare en el reconocimiento de que la proporción de sexos evolutivamente estable depende crucialmente de que las partes en la carrera de armamentos tengan poder práctico, pero reconocemos una serie más amplia de posibles disposiciones de poder que la que ellos hicieron. En {77} efecto, Trivers y Hare dedujeron las consecuencias de dos supuestos alternativos sobre el poder práctico; en primer lugar el supuesto de que la reina ejerce todo el poder, y en segundo lugar, la suposición de que las obreras ejercen todo el poder. Pero podrían hacerse muchos otros supuestos posibles, y cada uno daría lugar a una predicción diferente respecto a la proporción de sexos evolutivamente estable. De hecho, en otras partes de su artículo,  Trivers y Hare consideran algunos de ellos, por ejemplo, el supuesto de que las obreras sean capaces de poner sus propios huevos masculinos.