Agradezco
al Dr. J.P. Hailman por no tener en cuenta mi reacción sarcástica con un
colega por un artículo que fue una breve prueba de este libro
(Dawkins 1978a): 'Richard Dawkins ha redescubierto el organismo'. La ironía no me pasó desapercibida, pero tiene su miga. Estamos
de acuerdo en que hay algo especial en el organismo individual como un
nivel en la jerarquía de la vida, pero no es algo obvio, para ser
aceptado sin rechistar. Mi esperanza es que este libro haya revelado que hay una segunda cara del cubo de Necker. Pero los cubos de Necker tienen el hábito de voltearse de nuevo a su posición original, y luego volver a alternar. Sea
lo que sea lo especial del organismo individual como una
unidad de la vida, deberíamos como mínimo verlo con más claridad, por haber
visto el otro lado del cubo de Necker, por haber entrenado nuestros
ojos para ver a través de las paredes del cuerpo en el mundo de replicadores, y fuera y más allá de sus fenotipos extendidos.
Entonces, ¿qué es lo que tiene de especial el organismo individual? Habida
cuenta de que la vida puede ser vista como un conjunto de replicadores
con sus herramientas fenotípicas extendidas de supervivencia, ¿por qué en la práctica los replicadores han elegido agruparse entre sí por cientos de miles en células? ¿y por qué han influido
en esas células para clonarse a sí mismos por millones de miles de millones en organismos?
La lógica de los sistemas complejos sugiere un tipo de respuesta. Simon
(1962) ha escrito un estimulante ensayo sobre 'La arquitectura de la
complejidad', que sugiere (usando una parábola de dos relojeros
denominada Tempus y Hora, que se ha convertido en muy conocida), una
razón funcional general del por qué una organización compleja de cualquier
tipo, biológica o artificial, tiende a organizarse en jerarquías anidadas de subunidades repetidas. He
desarrollado su argumento en el contexto etológico, concluyendo que la
evolución de los estadísticamente 'improbables conjuntos avanza más
rápidamente si hay una sucesión de subconjuntos estables intermedios. Dado
que el argumento se puede aplicar a cada subconjunto, se deduce que los
sistemas altamente complejos que existen en el mundo es probable que
tengan una arquitectura jerárquica' (Dawkins 1976b). En el presente contexto, la jerarquía se compone de genes dentro de células, y de células dentro de organismos. Margulis
(1981) expone convincentes y fascinantes argumentos de la vieja idea de que la
jerarquía contiene otro nivel intermedio: las 'células' eucariotas son en
sí mismas, en cierto sentido, grupos multicelulares, uniones
simbióticas de entidades tales como mitocondrias, plástidos y cilios, que son homólogas a, y descendientes de, las células procariotas. No voy a continuar con el asunto aquí. La explicación de Simon es muy general, y necesitamos una respuesta más concreta a la
pregunta de por qué los replicadores {252} decidieron organizar sus
fenotipos en unidades funcionales, sobre todo en dos niveles, el de la
célula y el del organismo multicelular.
viernes, 28 de septiembre de 2018

viernes, 21 de septiembre de 2018
Capítulo 14.- Redescubriendo el Organismo (250)
14.- Redescubriendo el Organismo
Después de haber dedicado la mayor parte de este libro a restar importancia al organismo individual, y a construir una imagen alternativa de un torbellino de replicadores egoístas, luchando por su propia supervivencia a costa de sus alelos, atravesando sin obstáculos las paredes del cuerpo individual, como si esas paredes fueran transparentes, interactuando con el mundo y con los otros sin tener en cuenta los límites del organismo, ahora dudamos. Realmente hay algo bastante impresionante respecto a los organismos individuales. Si realmente pudiéramos llevar gafas que hicieran los cuerpos transparentes y mostraran sólo el ADN, la distribución de ADN que íbamos a ver en el mundo sería abrumadoramente no aleatoria. Si los núcleos celulares brillaran como estrellas y todo lo demás fuera invisible, los organismos multicelulares aparecerían como galaxias compactas con un enorme espacio entre ellas. Un millón de millones de puntitos brillantes que se mueven al unísono entre sí y fuera de sintonía con todos los miembros de las otras galaxias.
Un organismo es una máquina físicamente diferenciada, generalmente aislada de las otras máquinas. Cuenta con una organización interna, a menudo de complejidad asombrosa, y muestra en tal alto grado la cualidad que Julian Huxley (1912) etiquetó 'individualidad', -literalmente, indivisibilidad- la cualidad de ser lo suficientemente heterogéneo en forma que se vuelve no funcional si se corta por la mitad. Genéticamente hablando, también, el organismo individual es por lo general una unidad claramente definible, cuyas células tienen los mismos genes que las otras células, pero diferentes genes que las células de otros organismos. Para un inmunólogo, el organismo individual tiene un tipo especial de 'singularidad' (Medawar 1957), por la que aceptará fácilmente injertos de otras partes de su propio cuerpo, pero no de otros cuerpos. Para el etólogo -y esto es realmente un aspecto de la indivisibilidad de Huxley- el organismo es una unidad de acción de comportamiento en un sentido mucho más fuerte que, pongamos, dos organismos, o un miembro de un organismo. Un organismo tiene un sistema nervioso central coordinado. Toma 'decisiones' (Dawkins y Dawkins 1973) como una unidad. Todos sus miembros conspiran juntos en armonía para lograr un fin a la vez. En aquellas ocasiones en que dos o más organismos tratan de coordinar sus esfuerzos, pongamos cuando una manada de leones {251} acecha cooperativamente la presa, las hazañas de coordinación entre los individuos son débiles en comparación con la orquestación compleja, de alta precisión espacial y temporal, de los cientos de músculos dentro de cada individuo. Incluso una estrella de mar, cuyos pies ambulacrales disfrutan de un grado de autonomía y se puede dividir el animal en dos si se le corta quirúrgicamente el anillo nervioso circum-oral, se ve como una sola entidad, y en la naturaleza se comporta como si tuviera un solo propósito.
viernes, 14 de septiembre de 2018
Capítulo 13.- Acción a Distancia (y 249)
Una
vez, cuando traté de persuadir de esto a un colega -es un firme
creyente en el poder de la selección darwiniana, y un buen investigador
de campo en ello- pensó que yo estaba haciendo un razonamiento anti-adaptación.
Me
advirtió que una y otra vez se había explicado algún capricho del
comportamiento animal o de morfología como sin función o
desadaptativo, sólo para descubrir que no lo habían entendido plenamente. Estaba en lo correcto. Pero el razonamiento que estoy haciendo es diferente. Cuando
digo aquí que un patrón de comportamiento es desadaptativo, solamente
quiero decir que es desadaptativo para el animal que lo realiza. Lo
que sugiero es que el individuo que realiza la conducta no es la entidad para cuyo beneficio el comportamiento es una adaptación. Las adaptaciones benefician a los replicadores genéticos responsables
de las mismas, y sólo incidentalmente a los organismos individuales
involucrados.
Este podría haber sido el final del libro. Hemos ampliado el fenotipo tan lejos como puede llegar. Los últimos tres capítulos constituyen de alguna forma una culminación, y podríamos habernos contentado con esto como consumación. Pero prefiero terminar con optimismo, para iniciar el despertar de una nueva curiosidad tentativa. Confesé desde el principio que sería un abogado, y una manera fácil para cualquier defensor de preparar el terreno de su caso es atacar a la alternativa. Por tanto, antes de defender la doctrina del fenotipo extendido del replicador activo de una línea germinal, he tratado de socavar la confianza del lector en el organismo individual como unidad de beneficio adaptativo. Pero, ahora que hemos discutido el mismo fenotipo extendido, es el momento de reabrir la cuestión de la existencia del organismo y su evidente importancia en la jerarquía de la vida, y ver si lo vemos más claro a la luz del fenotipo extendido. Dado que la vida no tiene porqué ser envasada en organismos discretos, y admitiendo que los organismos no siempre son totalmente discretos, ¿por qué, sin embargo, hizo que los replicadores de la línea germinal activa optaran tan conspicuamente por el camino del organismo para hacer las cosas?
Este podría haber sido el final del libro. Hemos ampliado el fenotipo tan lejos como puede llegar. Los últimos tres capítulos constituyen de alguna forma una culminación, y podríamos habernos contentado con esto como consumación. Pero prefiero terminar con optimismo, para iniciar el despertar de una nueva curiosidad tentativa. Confesé desde el principio que sería un abogado, y una manera fácil para cualquier defensor de preparar el terreno de su caso es atacar a la alternativa. Por tanto, antes de defender la doctrina del fenotipo extendido del replicador activo de una línea germinal, he tratado de socavar la confianza del lector en el organismo individual como unidad de beneficio adaptativo. Pero, ahora que hemos discutido el mismo fenotipo extendido, es el momento de reabrir la cuestión de la existencia del organismo y su evidente importancia en la jerarquía de la vida, y ver si lo vemos más claro a la luz del fenotipo extendido. Dado que la vida no tiene porqué ser envasada en organismos discretos, y admitiendo que los organismos no siempre son totalmente discretos, ¿por qué, sin embargo, hizo que los replicadores de la línea germinal activa optaran tan conspicuamente por el camino del organismo para hacer las cosas?
viernes, 7 de septiembre de 2018
Capítulo 13.- Acción a Distancia (248)
Me resulta difícil imaginar qué matemáticas serían necesarias para la {248} comprensión de los detalles. Tengo
una visión borrosa de los caracteres fenotípicos en un espacio evolutivo siendo estirados por replicadores, bajo la selección, en diferentes direcciones. En la esencia de mi enfoque está que los replicadores que estiran de cualquier
característica fenotípica dada incluirán algunos desde fuera del
cuerpo, así como los que hay en su interior. Algunos, obviamente, serán estirados más fácilmente que otros, por lo que las flechas de fuerza tendrán diversa magnitud y dirección. Presumiblemente, la teoría de las carreras armamentistas -el efecto
enemigo raro, el principio de vida/cena, etc.- tendrá un papel
destacado a la hora de la asignación de estas magnitudes. Probablemente la proximidad
física de Sheer jugará un papel: parece probable que los genes,
en igualdad de condiciones, ejercen más poder sobre los caracteres
fenotípicos cercanos que sobre los lejanos. Como
un caso especialmente importante de esto, las células son en gran medida propensas a ser
influenciadas cuantitativamente por más genes dentro de
ellas que por genes dentro de otras células. Lo mismo ocurrirá para los cuerpos. Pero
estos serán los efectos cuantitativos, para ser pesados en la balanza
con otras consideraciones de la teoría de la carrera de armamentos. A
veces, se dice que debido al efecto enemigo raro, los genes en otros
organismos pueden ejercer más poder que los propios genes del cuerpo,
sobre aspectos particulares de su fenotipo. Mi presentimiento es que casi todos los caracteres fenotípicos se revelarán como portadores de las marcas de concertación entre las fuerzas internas y externas del replicador.
La idea de conflicto y acuerdo entre muchas presiones de selección llevadas por un carácter fenotípico determinado es, por supuesto, familiar en la biología ordinaria. A menudo hablamos de, por ejemplo, el tamaño de la cola de un ave como un compromiso entre las necesidades de la aerodinámica y las necesidades del atractivo sexual. No sé qué clase de matemáticas se consideran adecuadas para describir este tipo de conflicto y acuerdo dentro del cuerpo, pero sean las que sean, deben generalizarse para hacer frente a los problemas análogos de la acción genética a distancia y de los fenotipos extendidos.
Pero no tengo alas para volar en espacios matemáticos. Debe haber un mensaje verbal para aquellos que estudian los animales en el campo. ¿Qué diferencia habrá entre la doctrina del fenotipo extendido y lo que realmente vemos en los animales? La mayoría de los biólogos de campo serios ahora suscriben el teorema, en gran parte debido a Hamilton, que se espera que los animales se comporten para maximizar las posibilidades de supervivencia de todos los genes dentro de ellos. He modificado esto con un nuevo teorema central del fenotipo extendido: el comportamiento de un animal tiende a maximizar la supervivencia de los genes 'para' esa conducta, estén o no esos genes en el cuerpo del animal en particular que realiza la conducta. Los dos teoremas equivaldrían a lo mismo si los fenotipos animales siempre estuvieran bajo el control sin adulterar de sus propios genotipos, y sin la influencia de los genes de otros organismos. Antes de una teoría matemática para manejar las interacciones cuantitativas entre presiones contradictorias, tal vez la conclusión cualitativa más simple es que el comportamiento que estamos viendo puede ser, al menos en parte, una adaptación para la {249} preservación de genes de alguna otra planta o animal. Por lo tanto, puede ser una verdadera mala adaptación para el organismo que realiza tal comportamiento.
La idea de conflicto y acuerdo entre muchas presiones de selección llevadas por un carácter fenotípico determinado es, por supuesto, familiar en la biología ordinaria. A menudo hablamos de, por ejemplo, el tamaño de la cola de un ave como un compromiso entre las necesidades de la aerodinámica y las necesidades del atractivo sexual. No sé qué clase de matemáticas se consideran adecuadas para describir este tipo de conflicto y acuerdo dentro del cuerpo, pero sean las que sean, deben generalizarse para hacer frente a los problemas análogos de la acción genética a distancia y de los fenotipos extendidos.
Pero no tengo alas para volar en espacios matemáticos. Debe haber un mensaje verbal para aquellos que estudian los animales en el campo. ¿Qué diferencia habrá entre la doctrina del fenotipo extendido y lo que realmente vemos en los animales? La mayoría de los biólogos de campo serios ahora suscriben el teorema, en gran parte debido a Hamilton, que se espera que los animales se comporten para maximizar las posibilidades de supervivencia de todos los genes dentro de ellos. He modificado esto con un nuevo teorema central del fenotipo extendido: el comportamiento de un animal tiende a maximizar la supervivencia de los genes 'para' esa conducta, estén o no esos genes en el cuerpo del animal en particular que realiza la conducta. Los dos teoremas equivaldrían a lo mismo si los fenotipos animales siempre estuvieran bajo el control sin adulterar de sus propios genotipos, y sin la influencia de los genes de otros organismos. Antes de una teoría matemática para manejar las interacciones cuantitativas entre presiones contradictorias, tal vez la conclusión cualitativa más simple es que el comportamiento que estamos viendo puede ser, al menos en parte, una adaptación para la {249} preservación de genes de alguna otra planta o animal. Por lo tanto, puede ser una verdadera mala adaptación para el organismo que realiza tal comportamiento.
viernes, 31 de agosto de 2018
Capítulo 13.- Acción a Distancia (247)
 |
| Linum usitatissimum con Melampsora lini. Fuente. |
Y también más allá de los reinos. Tenga en cuenta la interacción entre el lino (Linum usitatissimum) [Nota del Traductor: Dawkins utiliza el nombre Linum usitissimum, por motivos que desconozco, cuando el nombre mucho más extesamente aceptado es Linum usitatissimum] y el hongo del moho Melampsora lini, aunque esta es una interacción antagonista en vez de cooperativa. 'Esencialmente hay un emparejamiento de uno a uno en el que un alelo específico en el lino confiere resistencia a un alelo específico en el hongo. Este sistema "gen-por-gen" ya se ha encontrado en muchas otras especies de plantas... Los modelos de interacciones gen-por-gen no se formulan en términos de parámetros ecológicos, debido a la naturaleza específica de los sistemas genéticos. Es un caso en el que las interacciones genéticas entre las especies pueden entenderse sin referencia a los fenotipos. Un modelo de un sistema gen-por-gen tendría necesariamente dependencia de la frecuencia entre-especies...' (Slatkin y Maynard Smith 1979, pp. 255-256).
En este capítulo, como en otros, he utilizado experimentos mentales hipotéticos como ayuda para una explicación clara. En caso de que se encuentren demasiado exagerados, permítanme referirme de nuevo a Wickler para un ejemplo de una cigarra real que hace algo al menos tan descabellado como cualquier cosa que haya imaginado. Ityraea nigrocincta, como I. gregorii, practica el mimetismo cooperativo como inflorescencias de altramuces, pero, 'además, posee una peculiaridad, y es que los dos sexos tienen dos formas, una forma verde y una forma amarilla. Estas dos formas pueden agazaparse juntas, y las formas verdes tienden a sentarse en la parte superior del tronco, especialmente en los tallos verticales, con las formas amarillas debajo. El resultado es una "inflorescencia" extremadamente convincente, porque las verdaderas flores de las "inflorescencias" a menudo se abren progresivamente desde la base hasta el ápice, de manera que los brotes verdes aún están presentes en la punta cuando la base está cubierta de flores abiertas' (Wickler 1968).
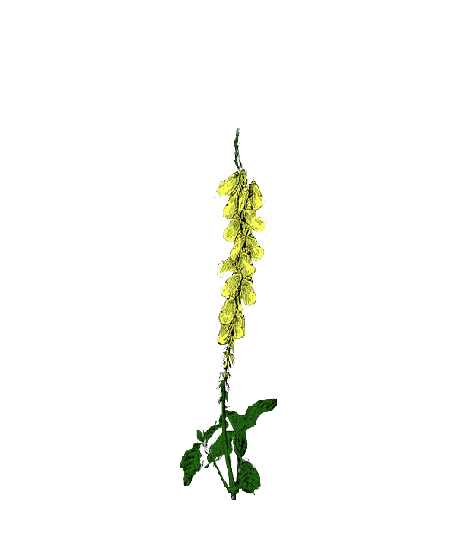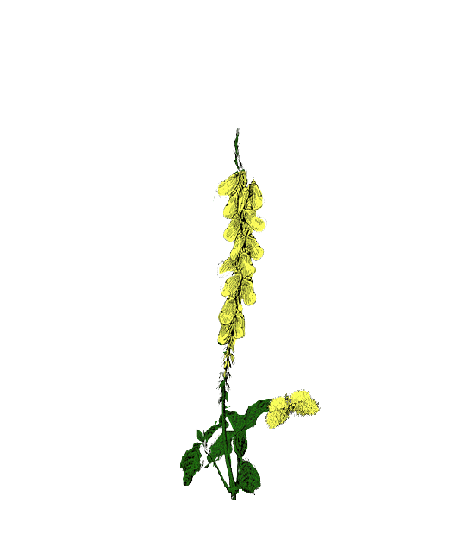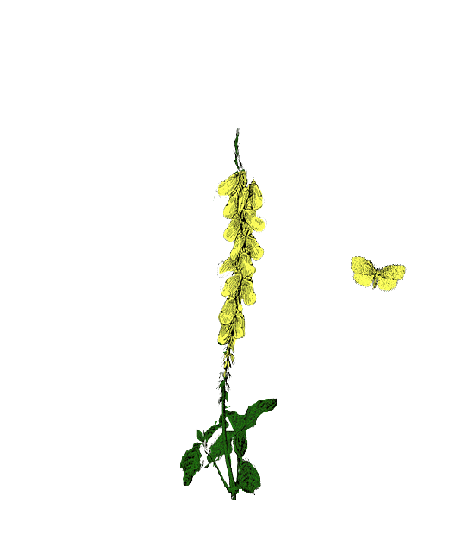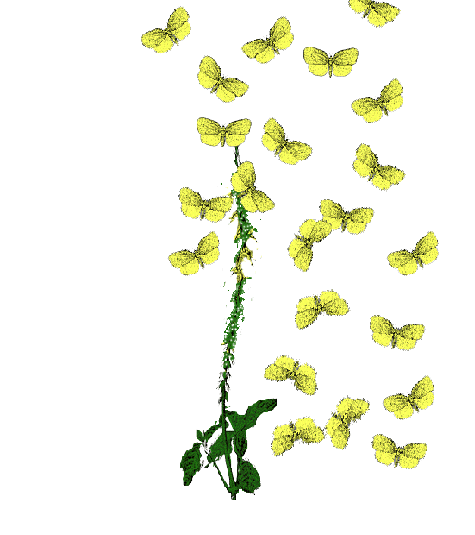 |
| Representación de insectos mimetizando una inflorescencia. Fuente. |
Estos tres capítulos han ampliado el concepto de la expresión fenotípica de los genes por fáciles etapas. Comenzamos con el reconocimiento de que incluso dentro de un cuerpo hay muchos grados de distancia del control del gen sobre los fenotipos. Para un gen nuclear, presumiblemente es más simple controlar la forma de la célula en la que se encuentra que controlar la forma de alguna otra célula, o de todo el cuerpo en el que la célula se asienta. Sin embargo, convencionalmente agrupamos los tres juntos y les llamamos a todo el control genético del fenotipo. Mi tesis ha sido que el paso conceptual más leve fuera del cuerpo inmediato es un paso comparativamente menor. No obstante, es poco familiar, y he tratado de desarrollar la idea en etapas, desde objetos inanimados hasta los parásitos internos que controlan el comportamiento de sus hospedadores. A partir de los parásitos internos nos mudamos vía cucos a la acción a distancia. En teoría, la acción genética a distancia podría incluir casi todas las interacciones entre individuos de la propia o de diferentes especies. El mundo viviente puede ser visto como una red de campos imbricados de poder replicador.
viernes, 24 de agosto de 2018
Capítulo 13.- Acción a Distancia (246)
Consideremos
de nuevo la forma en que un par de genes puede
interactúar en el mismo acervo genético, y más específicamente las formas en que la frecuencia de cada
uno en el acervo genético {246}puede afectar las posibilidades de
supervivencia del otro. La primera forma, y la que sospecho que Mayr tenía principalmente en mente, es a través de compartir el mismo cuerpo. Las
posibilidades de supervivencia de un gen están influenciadas por la
frecuencia en la población del gen B, debido a que la frecuencia de B
influye en la probabilidad de que A se vaya a encontrar compartiendo un cuerpo
con B. La interacción entre los loci que determinan la dirección de las rayas de la polilla y la dirección en que se posa fue un ejemplo de esto. Como lo fue la hipotética oruga que imita al altramuz. Como lo es un par de genes que codifican enzimas que son necesarias
para las etapas sucesivas en una vía en particular sintetizando una
sustancia útil. Llame a este tipo de interacción genética interacción 'dentro-del-cuerpo'.La
segunda forma en que la frecuencia de un gen B en una población puede
afectar a las posibilidades de supervivencia de un gen A es la
interacción 'entre-cuerpos'. Aquí la
influencia fundamental es la probabilidad de que cualquier cuerpo
en el que se ubique A se vaya a encontrar con otro cuerpo en el que que se ubique B. Mis cigarras hipotéticas dieron una muestra de ello. Lo mismo ocurre con la teoría de la proporción de sexos de Fisher. Como he destacado, ha sido uno de mis propósitos en este capítulo minimizar la distinción entre los dos tipos de interacción entre genes, la interacción dentro-del-cuerpo y la interacción entre-cuerpos.
Pero ahora considere las interacciones entre los genes en diferentes acervo genéticos, en diferentes especies. Se verá que hay más bien poca distinción entre una interacción de genes entre especies y una interacción génica entre-individuos dentro-de-la-especie. En ninguno de los casos los genes que interactúan comparten un cuerpo. Es decir, en ambos casos las perspectivas de supervivencia de cada uno pueden depender de la frecuencia, en su propio acervo genético, del otro gen. Permítame ilustrar la cuestión de nuevo con el experimento mental del altramuz. Supongamos que hay una especie de escarabajo que es polimórfico como las cigarras. En algunas áreas, resulta que las formas rosa de ambas especies, las cigarras y los escarabajos, predominan, mientras que en otras zonas predominan las formas azules. Las dos especies difieren en el tamaño del cuerpo. 'Cooperan' en fingir inflorescencias, con las cigarras de cuerpo más pequeño que tienden a sentarse cerca de las puntas de los tallos, donde cabría esperar pequeñas flores, mientras que los escarabajos más grandes tienden a sentarse más cerca de la base de cada falsa inflorescencia. Una 'inflorescencia' conjunta escarabajo/cigarra engañaría a los pájaros más eficazmente que una de solo escarabajos o solo cigarras.
Pero ahora considere las interacciones entre los genes en diferentes acervo genéticos, en diferentes especies. Se verá que hay más bien poca distinción entre una interacción de genes entre especies y una interacción génica entre-individuos dentro-de-la-especie. En ninguno de los casos los genes que interactúan comparten un cuerpo. Es decir, en ambos casos las perspectivas de supervivencia de cada uno pueden depender de la frecuencia, en su propio acervo genético, del otro gen. Permítame ilustrar la cuestión de nuevo con el experimento mental del altramuz. Supongamos que hay una especie de escarabajo que es polimórfico como las cigarras. En algunas áreas, resulta que las formas rosa de ambas especies, las cigarras y los escarabajos, predominan, mientras que en otras zonas predominan las formas azules. Las dos especies difieren en el tamaño del cuerpo. 'Cooperan' en fingir inflorescencias, con las cigarras de cuerpo más pequeño que tienden a sentarse cerca de las puntas de los tallos, donde cabría esperar pequeñas flores, mientras que los escarabajos más grandes tienden a sentarse más cerca de la base de cada falsa inflorescencia. Una 'inflorescencia' conjunta escarabajo/cigarra engañaría a los pájaros más eficazmente que una de solo escarabajos o solo cigarras.
viernes, 17 de agosto de 2018
Capítulo 13.- Acción a Distancia (245)
Para continuar mi serie de citas de Mayr:
El lector ya no tendrá dificultad en adivinar cómo se ampliará la lista de Mayr. La acción conjunta entre los genes en diferentes organismos no es fundamentalmente diferente de la acción conjunta entre los genes en el mismo organismo. Cada gen funciona en un mundo de consecuencias fenotípicas de otros genes. Algunos de aquellos otros genes serán miembros del mismo genoma. Otros serán miembros del mismo acervo génico operando a través de otros organismos. Incluso otros pueden ser miembros de diferentes acervos génicos, diferentes especies, diferentes phyla.
Otra vez Mayr da en el clavo, pero su 'fenotipo' no es el último: se puede extender fuera del cuerpo individual.
Excelente, pero recuerde que los 'fondos genéticos' pueden incluir genes en otros organismos, así como genes dentro del mismo organismo.
Ahora el mismo Mayr ha pasado sutilmente a hablar de un acervo génico coadaptado, en lugar de un genoma individual coadaptado. Este es un gran paso en la dirección correcta, pero todavía tiene que dar un paso más. Aquí Mayr está hablando de las interacciones entre todos los genes en un solo acervo génico, con independencia de los cuerpos en los que resulta que se sitúan. En última instancia, la doctrina del fenotipo extendido nos obliga a reconocer el mismo tipo de interacciones entre los genes de diferentes acervos génicos, diferentes phyla, diferentes reinos.
"El resultado de la selección coadaptativa es un complejo de genes armoniosamente integrado. La acción conjunta de los genes puede ocurrir en muchos niveles, {245} como el del cromosoma, núcleo, célula, tejido, órgano, y todo el organismo."
El lector ya no tendrá dificultad en adivinar cómo se ampliará la lista de Mayr. La acción conjunta entre los genes en diferentes organismos no es fundamentalmente diferente de la acción conjunta entre los genes en el mismo organismo. Cada gen funciona en un mundo de consecuencias fenotípicas de otros genes. Algunos de aquellos otros genes serán miembros del mismo genoma. Otros serán miembros del mismo acervo génico operando a través de otros organismos. Incluso otros pueden ser miembros de diferentes acervos génicos, diferentes especies, diferentes phyla.
"La naturaleza de los mecanismos funcionales de la interacción fisiológica son [sic] de menor interés solo para el evolucionista, cuya principal preocupación es la viabilidad del producto final, el fenotipo."
Otra vez Mayr da en el clavo, pero su 'fenotipo' no es el último: se puede extender fuera del cuerpo individual.
"Muchos dispositivos tienden a mantener el status quo de los acervos génicos, cuantitativa y cualitativamente. El límite inferior de la diversidad genética está determinado por la ventaja frecuente de heterocigosidad ... El límite superior está determinado por el hecho de que sólo pueden ser incorporados aquellos genes que son capaces de 'coadaptarse' armoniosamente. Ningún gen tiene un valor selectivo fijo; el mismo gen puede conferir alta aptitud en un fondo genético y ser prácticamente letal en otro."
Excelente, pero recuerde que los 'fondos genéticos' pueden incluir genes en otros organismos, así como genes dentro del mismo organismo.
"El resultado de la estrecha interdependencia de todos los genes en un acervo génico es una cohesión estrecha. No puede cambiarse ninguna frecuencia de genes, ni ningún gen se añade al acervo génico, sin un efecto sobre el genotipo como un todo, y por lo tanto indirectamente sobre el valor selectivo de otros genes."
Ahora el mismo Mayr ha pasado sutilmente a hablar de un acervo génico coadaptado, en lugar de un genoma individual coadaptado. Este es un gran paso en la dirección correcta, pero todavía tiene que dar un paso más. Aquí Mayr está hablando de las interacciones entre todos los genes en un solo acervo génico, con independencia de los cuerpos en los que resulta que se sitúan. En última instancia, la doctrina del fenotipo extendido nos obliga a reconocer el mismo tipo de interacciones entre los genes de diferentes acervos génicos, diferentes phyla, diferentes reinos.
viernes, 10 de agosto de 2018
Capítulo 13.- Acción a Distancia (244)
Ahora
nos inventamos otro insecto, pongamos una oruga, que sea lo suficientemente
grande como para imitar toda una inflorescencia de altramuz, en lugar de
una sola flor. Cada segmento de la oruga imita una flor diferente de la inflorescencia. El color de cada segmento se controla en un locus diferente, siendo las alternativas rosa y azul. Una
oruga que sea toda azul o toda rosa tiene más éxito que una
que sea una mezcla de colores, ya que, una vez más, los depredadores han
aprendido que los altramuces de colores mixtos no se dan. No
hay ninguna razón teórica por la que no debieran producirse orugas de dos
tonos, pero suponga que, como resultado de la selección, no lo hacen: en
cualquier área concreta, las orugas locales son o todas rosa o todas
azules. De nuevo tenemos 'cooperación armoniosa'.
¿Cómo podría ocurrir la cooperación armoniosa? Por definición, el Modelo 1 se aplicaría sólo si los genes responsables de la coloración de los diferentes segmentos se vincularan estrechamente en un supergén. Los supergenes multicolores serían penalizados a expensas de los supergenes rosa puro y azul puro. Sin embargo, en esta especie hipotética, los genes relevantes son ampliamente diseminados en diferentes cromosomas, y tenemos que aplicar el Modelo 2. En cualquier área local dada, una vez que un color comienza a predominar en la mayoría de los loci, la selección trabaja para aumentar la frecuencia de ese color en todos los loci. En un área en particular, si todos los loci salvo uno están dominados por los genes de color rosa, el locus extraño que está dominado por los genes azules pronto se armonizará por selección. Como en el caso de las cigarras hipotéticas, los accidentes históricos en diferentes áreas locales configuran automáticamente las presiones de selección a favor de uno u otro de los dos estados evolutivamente estables.
El objetivo de este experimento mental es que el Modelo 2 es igualmente aplicable tanto entre como dentro de los individuos. Tanto en el caso de la oruga como el de la cigarra, los genes de color rosa se ven favorecidos en los acervos genéticos ya dominados por los genes rosa, y los genes azules se ven favorecidos en los acervos genéticos ya dominados por los genes azules. En las orugas, la razón es que cada gen se beneficia si comparte un cuerpo con otros genes que producen el mismo color que el suyo mismo. En las cigarras, la razón es que cada gen se beneficia si el cuerpo en el que está se encuentra con otro cuerpo que lleva un gen que produce el mismo color que el suyo mismo. En el ejemplo de la oruga, los genes que cooperan ocupan diferentes loci en el mismo individuo. En el ejemplo de la cigarra, los genes que cooperan ocupan el mismo locus en diferentes individuos. Mi propósito es cerrar la brecha conceptual entre estos dos tipos de interacción de genes, demostrando que la interacción genética a distancia no es, en principio, diferente de la interacción genética dentro de un cuerpo.
¿Cómo podría ocurrir la cooperación armoniosa? Por definición, el Modelo 1 se aplicaría sólo si los genes responsables de la coloración de los diferentes segmentos se vincularan estrechamente en un supergén. Los supergenes multicolores serían penalizados a expensas de los supergenes rosa puro y azul puro. Sin embargo, en esta especie hipotética, los genes relevantes son ampliamente diseminados en diferentes cromosomas, y tenemos que aplicar el Modelo 2. En cualquier área local dada, una vez que un color comienza a predominar en la mayoría de los loci, la selección trabaja para aumentar la frecuencia de ese color en todos los loci. En un área en particular, si todos los loci salvo uno están dominados por los genes de color rosa, el locus extraño que está dominado por los genes azules pronto se armonizará por selección. Como en el caso de las cigarras hipotéticas, los accidentes históricos en diferentes áreas locales configuran automáticamente las presiones de selección a favor de uno u otro de los dos estados evolutivamente estables.
El objetivo de este experimento mental es que el Modelo 2 es igualmente aplicable tanto entre como dentro de los individuos. Tanto en el caso de la oruga como el de la cigarra, los genes de color rosa se ven favorecidos en los acervos genéticos ya dominados por los genes rosa, y los genes azules se ven favorecidos en los acervos genéticos ya dominados por los genes azules. En las orugas, la razón es que cada gen se beneficia si comparte un cuerpo con otros genes que producen el mismo color que el suyo mismo. En las cigarras, la razón es que cada gen se beneficia si el cuerpo en el que está se encuentra con otro cuerpo que lleva un gen que produce el mismo color que el suyo mismo. En el ejemplo de la oruga, los genes que cooperan ocupan diferentes loci en el mismo individuo. En el ejemplo de la cigarra, los genes que cooperan ocupan el mismo locus en diferentes individuos. Mi propósito es cerrar la brecha conceptual entre estos dos tipos de interacción de genes, demostrando que la interacción genética a distancia no es, en principio, diferente de la interacción genética dentro de un cuerpo.
viernes, 3 de agosto de 2018
Capítulo 13.- Acción a Distancia (243)
En
varias especies de insectos, cada individuo imita una flor de una inflorescencia multifloral, y por tanto es necesaria una
multitud cooperante antes de que pueda imitarse convincentemente toda una inflorescencia. 'En
el este de África, es posible encontrar una planta en particular, con
muy hermosas inflorescencias ... las flores individuales tienen alrededor
de medio centímetro de altura, se parecen bastante a flores de retama, y
están dispuestas en torno a un eje vertical, como las flores del
altramuz. Botánicos
experimentados habían tomado esta planta por Tinnaea o Sesamopteris, y se
encontraron de repente sosteniendo un tallo desnudo después de
deshojar la "flor". La flor no había caído -¡había volado! La "flor" se compone de cigarras, ya sea Ityraea gregorii u Oyarina nigritarsus (Wickler 1968, p. 61).
Para desarrollar mi argumento necesito enunciar ciertas suposiciones detalladas. Puesto que no se conocen los detalles de las presiones de selección que influyen sobre estas especies particulares de cigarra, será más seguro si me invento una cigarra hipotética que básicamente practique el mismo truco de mímesis de grupo que Ityraea y Oyarina. Establezco el supuesto de que mi especie se encuentra en dos formas de color, rosa y azul, y que las dos formas imitan dos variedades de altramuz de color diferente. Se supone que los altramuces rosa y los azules son igualmente abundantes en todo el rango geográfico de las especies de cigarra, pero en cualquier área local todas las cigarras son o bien de color rosa o bien de color azul. La 'cooperación' ocurre de manera que los individuos se agrupan cerca de las puntas de los tallos de las plantas, y en conjunto se asemejan a inflorescencias de altramuz. Es 'armoniosa' en el sentido de que no se dan grupos de colores mixtos: supongo que un racimo de color mezclado es especialmente propenso a ser descubierto por los depredadores como una falsificación, ya que los altramuces reales no tienen inflorescencias en dos tonos.
Así es como la armonía podría haber ocurrido a través de la selección dependiente de la frecuencia del Modelo 2. En cualquier área dada, un accidente histórico determinó que hubiera una mayoría inicial a favor de un tipo de color o el otro. En un área que pasara a ser dominada por cigarras rosa, serían sancionadas las azules. En un área que pasara a ser dominada por cigarras azules, una de color rosa se vería penalizada. En ambos casos, el simple hecho de ser minoría sería desfavorecido, porque sería más probable que un miembro del tipo minoritario, por las leyes del azar, se encontrase participando en un grupo mixto que un miembro del tipo del mayoritario {244}. A nivel de genes, podemos decir que los genes rosa se ven favorecidos en un acervo genético dominado por genes rosa, y los genes azules se ven favorecidos en un acervo genético dominado por genes azules.
Para desarrollar mi argumento necesito enunciar ciertas suposiciones detalladas. Puesto que no se conocen los detalles de las presiones de selección que influyen sobre estas especies particulares de cigarra, será más seguro si me invento una cigarra hipotética que básicamente practique el mismo truco de mímesis de grupo que Ityraea y Oyarina. Establezco el supuesto de que mi especie se encuentra en dos formas de color, rosa y azul, y que las dos formas imitan dos variedades de altramuz de color diferente. Se supone que los altramuces rosa y los azules son igualmente abundantes en todo el rango geográfico de las especies de cigarra, pero en cualquier área local todas las cigarras son o bien de color rosa o bien de color azul. La 'cooperación' ocurre de manera que los individuos se agrupan cerca de las puntas de los tallos de las plantas, y en conjunto se asemejan a inflorescencias de altramuz. Es 'armoniosa' en el sentido de que no se dan grupos de colores mixtos: supongo que un racimo de color mezclado es especialmente propenso a ser descubierto por los depredadores como una falsificación, ya que los altramuces reales no tienen inflorescencias en dos tonos.
Así es como la armonía podría haber ocurrido a través de la selección dependiente de la frecuencia del Modelo 2. En cualquier área dada, un accidente histórico determinó que hubiera una mayoría inicial a favor de un tipo de color o el otro. En un área que pasara a ser dominada por cigarras rosa, serían sancionadas las azules. En un área que pasara a ser dominada por cigarras azules, una de color rosa se vería penalizada. En ambos casos, el simple hecho de ser minoría sería desfavorecido, porque sería más probable que un miembro del tipo minoritario, por las leyes del azar, se encontrase participando en un grupo mixto que un miembro del tipo del mayoritario {244}. A nivel de genes, podemos decir que los genes rosa se ven favorecidos en un acervo genético dominado por genes rosa, y los genes azules se ven favorecidos en un acervo genético dominado por genes azules.
viernes, 27 de julio de 2018
Capítulo 13.- Acción a Distancia (242)
Después
de haber utilizado el Modelo 2 para el tipo de
armonía genética intracorporal que Mayr tenía en mente, ahora generalicemos las interacciones de genes 'extendidas' entre cuerpos. Vamos
a hablar de interacción genética a distancia, en lugar de
la acción fenotípica a distancia que fue objeto de la primera parte
de este capítulo. Esto
es fácil de hacer, porque la selección dependiente de la frecuencia se ha aplicado clásicamente a las interacciones entre cuerpos, a partir de la teoría de la proporción de sexos de Fisher (1930a). ¿Por qué las poblaciones tienen una proporción de sexos equilibrada? El Modelo 1 sugiere que se debe a que las poblaciones con una proporción de sexos desequilibrada se han extinguido. La propia
hipótesis de Fisher es, por supuesto, una versión del Modelo 2. Si una
población pasa a tener una relación de sexo desequilibrada, la selección
dentro de esa población favorece a los genes que tienden a restablecer
el equilibrio. No hay necesidad de postular una meta-población de poblaciones, como en el caso del modelo 1.
Otros ejemplos de las ventajas dependientes de la frecuencia son bien conocidas por los genetistas (por ejemplo, Clarke (Clarke 1979), y yo hemos discutido previamente su relevancia en la controversia sobre la 'cooperación armoniosa' (Dawkins 1980, pp. 22-24). La ideaa que quiero destacar aquí es que, desde el punto de vista de cada entidad replicante, sus relaciones de armonía, cooperación y complementariedad dentro de los genomas no son, en principio, diferentes de las relaciones entre los genes de diferentes genomas. El gen para posarse en posición vertical sobre los troncos de los árboles se ve favorecido en un acervo genético, que pasa a ser rico en genes de rayas longitudinales, y viceversa. Aquí, como en el ejemplo bioquímico de la cadena de enzimas, la cooperación tiene lugar dentro de los cuerpos: la importancia del hecho de que el acervo genético sea rico en genes para rayas longitudinales es que cualquier gen dado en el locus que determina el comportamiento de posarse es, por tanto, estadísticamente probable que sea en un cuerpo rayado longitudinalmente. Sugiero que debemos pensar primordialmente en los genes como siendo seleccionados en el contexto de los otros genes que pasan a ser frecuentes en el acervo genético, y sólo en segundo lugar hacer una distinción entre si las principales interacciones entre genes ocurren dentro de los cuerpos o entre ellos.
Wickler (1968), en su fascinante estudio sobre el mimetismo animal, señala que los individuos a veces parecen cooperar en la consecución de semejanza mimética. Relata una observación de Koenig de lo que parecía ser una 'anémona' marina en un acuario. Al día siguiente había dos anémonas, cada una la mitad del tamaño de la original, y el día después la gran anémona original, al parecer, se había reconstituido. La imposibilidad {243} de esto último llevó a Koenig a investigar en detalle, y descubrió que la anémona era en realidad una falsificación, elaborada por numerosos gusanos anélidos cooperantes. Cada gusano representaba un tentáculo, y se agrupaban en un círculo en la arena. Los peces parecían tragarse el engaño, como le sucedió al principio a Koenig, porque evitaron a la falsa anémona de la misma forma que lo harían con una real. Supuestamente, cada gusano individual ganó protección frente a los peces depredadores, al unirse en el anillo mimético cooperativo. Sugiero que no es útil hablar de grupos de gusanos que forman anillos como siendo seleccionados sobre los grupos que no lo hacen. Más bien, los individuos que se integran en anillos se ven favorecidos en las poblaciones que forman anillos.
Otros ejemplos de las ventajas dependientes de la frecuencia son bien conocidas por los genetistas (por ejemplo, Clarke (Clarke 1979), y yo hemos discutido previamente su relevancia en la controversia sobre la 'cooperación armoniosa' (Dawkins 1980, pp. 22-24). La ideaa que quiero destacar aquí es que, desde el punto de vista de cada entidad replicante, sus relaciones de armonía, cooperación y complementariedad dentro de los genomas no son, en principio, diferentes de las relaciones entre los genes de diferentes genomas. El gen para posarse en posición vertical sobre los troncos de los árboles se ve favorecido en un acervo genético, que pasa a ser rico en genes de rayas longitudinales, y viceversa. Aquí, como en el ejemplo bioquímico de la cadena de enzimas, la cooperación tiene lugar dentro de los cuerpos: la importancia del hecho de que el acervo genético sea rico en genes para rayas longitudinales es que cualquier gen dado en el locus que determina el comportamiento de posarse es, por tanto, estadísticamente probable que sea en un cuerpo rayado longitudinalmente. Sugiero que debemos pensar primordialmente en los genes como siendo seleccionados en el contexto de los otros genes que pasan a ser frecuentes en el acervo genético, y sólo en segundo lugar hacer una distinción entre si las principales interacciones entre genes ocurren dentro de los cuerpos o entre ellos.
Wickler (1968), en su fascinante estudio sobre el mimetismo animal, señala que los individuos a veces parecen cooperar en la consecución de semejanza mimética. Relata una observación de Koenig de lo que parecía ser una 'anémona' marina en un acuario. Al día siguiente había dos anémonas, cada una la mitad del tamaño de la original, y el día después la gran anémona original, al parecer, se había reconstituido. La imposibilidad {243} de esto último llevó a Koenig a investigar en detalle, y descubrió que la anémona era en realidad una falsificación, elaborada por numerosos gusanos anélidos cooperantes. Cada gusano representaba un tentáculo, y se agrupaban en un círculo en la arena. Los peces parecían tragarse el engaño, como le sucedió al principio a Koenig, porque evitaron a la falsa anémona de la misma forma que lo harían con una real. Supuestamente, cada gusano individual ganó protección frente a los peces depredadores, al unirse en el anillo mimético cooperativo. Sugiero que no es útil hablar de grupos de gusanos que forman anillos como siendo seleccionados sobre los grupos que no lo hacen. Más bien, los individuos que se integran en anillos se ven favorecidos en las poblaciones que forman anillos.
Suscribirse a:
Entradas (Atom)