viernes, 26 de junio de 2015

Capítulo 5.- El Replicador Activo de la Línea Germinal (81)

5.- El replicador Activo de la Línea Germinal

En 1957, Beezer argumentó que el gen no podía seguir siendo un concepto de algo único, unitario. Lo dividió en tres: el mutón era la unidad mínima de cambio mutacional; el recón era la unidad mínima de recombinación; y el cistrón se definió de una manera que era sólo directamente aplicable  a los microorganismos, pero era efectivamente equivalente a la unidad responsable de la síntesis de una cadena polipeptídica. He sugerido la adición de una cuarta unidad, el optimón, la unidad de selección natural (Dawkins 1978b). Independientemente, E. Mayr (comunicación personal) acuñó el término 'selectón' para el mismo propósito. El optimón (o selectón) es el 'algo' a lo que nos referimos cuando hablamos de una adaptación 'para el bien de algo'. La pregunta es, ¿qué es ese algo; ¿qué es el optimón?

     La cuestión de cuál es la 'unidad de selección' ha sido objeto de debate de tanto en tanto en la literatura, tanto de la biología (Wynne-Edwards 1962; Williams 1966; Lewontin 1970, a; Leigh 1977; Dawkins 1978a; Alexander y Borgia 1978; Wright 1980) como de la filosofía (1980a Hull, b; Wimsatt en preparación). A primera vista, parece un argumento bastante inútilmente teológico. Hull, de hecho, lo considera explícitamente como 'metafísica' (aunque no peor que eso). Tengo que justificar mi interés en él. ¿Por qué es importante lo que consideremos como la unidad de selección? Hay varias razones, pero daré sólo una. Estoy de acuerdo con Williams (1966), Curio (1973) y otros en que hay una necesidad de desarrollar una ciencia seria de la
adaptación -teleonomía, como Pittendrigh (1958) la llamó. El problema teórico central de la teleonomía será el de la naturaleza de la entidad en cuyo nombre puede decirse que existen adaptaciones. ¿Son para el beneficio del organismo individual, para el beneficio del grupo o la especie de la que es miembro, o en beneficio de alguna unidad más pequeña dentro del organismo individual? Como ya se puso de relieve en el capítulo 3, esto es realmente importante. Las adaptaciones para el bien de un grupo se verán bastante diferentes de las adaptaciones para el bien de un individuo. {82}

viernes, 19 de junio de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (y 80)

Drongo negro dándose un baño de hormigas en la India. Fuente.
Este capítulo tenía la intención de iniciar el proceso para socavar la confianza del lector en el teorema central del organismo egoísta.Ese teorema indica que se espera que los animales individuales trabajen por el bien de su propia aptitud inclusiva, por el bien de las copias de sus propios genes. El capítulo ha mostrado que los animales son muy propensos a trabajar dura y vigorosamente por el bien de los genes de otro individuo, y en detrimento de los suyos. Esto no es necesariamente sólo una desviación temporal del teorema central, un breve interludio de la explotación manipuladora antes de que la contraselección en el linaje víctima reequilibre la balanza. He sugerido que asimetrías fundamentales como el principio de vida/cena, y el efecto enemigo escaso, se ocuparán de que muchas carreras armamentistas alcancen un estado estable en el que los animales de un bando trabajen permanentemente en beneficio de los animales del otro bando, y en su propio perjuicio; trabajar duro, con energía, sin motivo, en contra de sus propios intereses genéticos. Cuando vemos a los miembros de una especie comportándose consistentemente de una manera determinada, el 'baño de hormigas' en aves o lo que sea, tenemos tendencia a rascarnos la cabeza y preguntarnos cómo el comportamiento beneficia la aptitud inclusiva de los animales. ¿Cómo beneficia a un pájaro que las hormigas correteen a lo largo de sus plumas? ¿Se usan las hormigas para limpiarse de parásitos, o qué? ¡La conclusión de este capítulo es que podríamos en cambio preguntar qué aptitud inclusiva está beneficiando esa conducta! ¿es el propio animal, o algún manipulador al acecho entre bastidores? En el caso del 'baño de hormigas', parece razonable especular acerca de ventajas para el ave, ¡pero tal vez deberíamos dar por lo menos una mirada de reojo a la posibilidad de que sea una adaptación para el bien de las hormigas!

viernes, 12 de junio de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (79)

¿Muestran los machos de Trypoxylon politum algún comportamiento que pudiéramos sospechar que fuera un intento de tal manipulación, por ejemplo que se comporten como si trataran de prolongar la puesta de huevos?Brockmann describe un patrón de comportamiento curioso llamado 'sujeción'. Éste se ve alternando con la copulación durante los últimos minutos antes de que la hembra ponga su huevo. Además de unas breves cópulas durante toda la fase de provisión del nido, el final de la puesta de huevos y del sellado del nido es anunciado por un prolongado encuentro con repetidas cópulas, que dura varios minutos. Primero la hembra va de cabeza al nido de barro vertical en forma de órgano de tubo, y empuja su cabeza hacia el grupo de arañas paralizadas alojadas en la parte superior del nido. Su abdomen encara la entrada en la parte inferior del nido, y en esta posición el macho copula con ella. La hembra entonces se gira para quedar cabeza abajo hacia fuera del nido, y sondea las arañas con la punta de su abdomen, como si fuera a poner un huevo. Por su parte, el macho 'sujeta' la cabeza de ella entre sus patas delanteras durante aproximadamente medio minuto, agarra sus antenas y tira de ella hacia abajo, lejos de las arañas. Ella se da la vuelta y copulan nuevamente. La hembra otra vez se gira a sondear las arañas con su abdomen, el macho sostiene la cabeza de nuevo y la arrastra hacia abajo. Todo el ciclo se repite una media docena de veces. Finalmente, después de un especialmente largo encuentro de sujeción de cabeza, la hembra pone su huevo. 
HTrypoxylon politum-2@Nest
Hembra de Trypoxylon politum entrando en el nido, mientras el macho espera en la entrada. Fuente.

     Una vez se pone el huevo, el sexo está determinado. Ya hemos considerado la posibilidad hipotética de que las hormigas obreras manipulen el sistema nervioso de su madre, forzándola a cambiar su decisión de fertilizar en su interés genético. La sugerencia de Brockmann es que los machos de Trypoxylon politum podrían intentar una subversión similar, y que el comportamiento de sujetar la cabeza y arrastrarla puede ser una manifestación de su técnica de manipulación. Cuando el macho se apodera de las antenas de la hembra y la arrastra lejos de las arañas que está sondeando con su abdomen, ¿se la obliga a un aplazamiento de la puesta de huevos como un medio para aumentar la probabilidad de que el óvulo sea fertilizado en el oviducto? La verosimilitud de esta sugerencia podría depender de dónde se encuentra exactamente el huevo en el cuerpo de la hembra durante el tiempo de sujeción  ¿O, en realidad, como el Dr. WD Hamilton nos ha sugerido, el macho está chantajeando a la hembra, amenazándola con arrancarle la cabeza de un bocado a menos que posponga la puesta de huevos hasta después de la cópula? Tal vez él gana por repetidas cópulas, simplemente inundando pasajes internos de la hembra con su esperma, aumentando así la probabilidad de que el huevo se encuentre con un espermatozoide que no haya sido liberado deliberadamente de la espermateca por la hembra. Es evidente que éstas son sólo sugerencias para futuras {80} investigaciones, y Brockmann, junto con Grafen y otros, las están siguiendo. Los indicios preliminares, entiendo, no apoyan la hipótesis de que los machos realmente tengan éxito en ejercer el poder sobre la proporción de sexos .

viernes, 5 de junio de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (78)

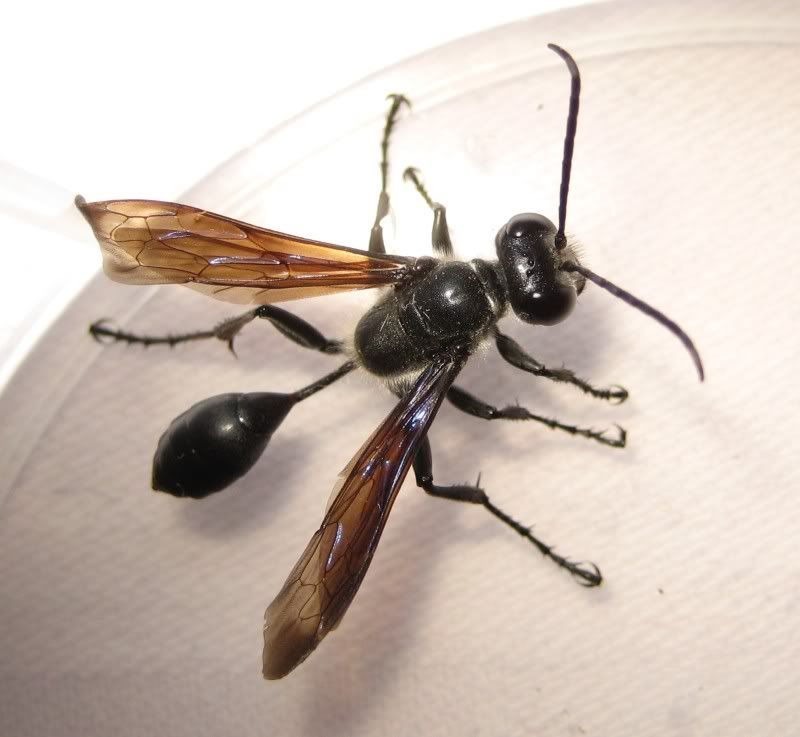
Trypoxylon politum. Fuente
Por ejemplo, podemos centrar nuestra atención de la investigación en el momento exacto en que una reina decide si va a fertilizar un óvulo dado o no. Es plausible suponer que, dado que el evento tiene lugar en el propio cuerpo de la reina, es probable que esa {78} decisión particular se  haya seleccionado para beneficiar los genes de la reina. Por plausible que sea, es precisamente este tipo de suposición lo que la doctrina del fenotipo extendido va a poner en cuestión. Por el momento, nos limitamos a señalar la posibilidad de que las obreras pueden manipular el sistema nervioso de la reina, a través de feromonas u otros medios, con el fin de alterar su comportamiento en favor de sus intereses genéticos. Del mismo modo, son los nervios y músculos de la obrera los que son inmediatamente responsables de alimentar a las larvas, con lo que no estamos, por tanto, necesariamente autorizados a suponer que los miembros de las obreras se mueven sólo por los intereses de los genes de las obreras. Como es bien sabido, hay un flujo de tráfico masivo de feromonas de la reina a las obreras, y es fácil imaginar una poderosa manipulación del comportamiento de las obreras por las reinas. El asunto es que cada hipótesis sobre el poder que pudiéramos enunciar produce predicciones comprobables acerca de la proporción de sexos, y es esta perspectiva la que que tenemos que agradecer a Trivers y Hare, no a su particular modelo cuyas predicciones comprobaron. Incluso cabe la posibilidad, en algunos himenópteros, de que los machos puedan ejercer poder. Brockmann (1980) está realizando un estudio intensivo de las avispas moldeadoras de barro Trypoxylon politum. Estas son 'solitarias' (a diferencia de las avispas verdaderamente sociales), pero no siempre se encuentran completamente solas. Como en otros esfécidos, cada hembra construye su propio nido (en este caso con barro), lo provisiona con presas paralizadas (arañas), pone un huevo en la presa, y luego sella el nido y comienza de nuevo el ciclo. En muchos himenópteros, la hembra lleva el suministro de esperma a partir de un breve período de inseminación temprano en la vida. Sin embargo, las Trypoxylon politum hembras copulan frecuentemente durante la vida adulta. Los machos frecuentan los nidos femeninos, sin perder ninguna oportunidad de copular con la hembra en cada uno de sus regresos al nido. Un macho puede pasar horas de una vez aposentado pasivamente en el nido, probablemente ayudando a protegerlo contra parásitos, y lucha con otros machos que intentan entrar. Entonces, a diferencia de la mayoría de himenópteros macho, la Trypoxylon politum masculina está presente en la escena de la acción. ¿No podría, por tanto, estar potencialmente en condiciones de influir en la proporción de sexos, de la forma que se ha postulado en las hormigas obreras?
Nidos de Trypoxylon politum seccionados. Fuente.


      Si los machos ejercieran el poder, ¿qué consecuencias esperaríamos? Puesto que un macho pasa todos sus genes a sus hijas, y ninguno a los hijos de su pareja, se verían favorecidos los genes tendentes a hacer que los machos prefieran hijas en vez de hijos. Si los machos ejercieran un poder total, determinando por completo la proporción de sexos de las crías de sus parejas, la consecuencia sería curiosa. No nacería ningún macho en la primera generación de poder masculino. Como resultado, en el año siguiente todos los huevos puestos no serían fecundados, así que serían masculinos. Por consiguiente, la población oscilaría violentamente y entonces se extinguiría (Hamilton 1967). Si los machos ejercieran una cantidad limitada de poder, sucederían consecuencias menos drásticas, y la situación sería formalmente análoga a la de la transmisión del cromosoma X en el sistema normal de genética diploide (Capítulo 8). En cualquier caso, un himenóptero macho, si se encontrara en condiciones de influir en la proporción de sexos de los hijos de su pareja, se esperaría que tratara de hacerlo en una dirección femenina. {79} Podría hacerlo tratando de influir en la decisión de su pareja de la conveniencia de liberar el esperma desde su espermateca. No es evidente cómo podría hacerlo en realidad, pero se sabe que las reinas de abejas tardan más en la puesta de un óvulo femenino que en uno masculino, tal vez usando el tiempo extra en lograr la fertilización. Sería interesante probar experimentalmente a interrumpir una reina en medio de la puesta de huevos, para ver si el retraso aumenta la probabilidad de que emergiera un óvulo femenino .

viernes, 29 de mayo de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (77)

Grafen, como Bulmer y Taylor (en preparación), ha explorado las consecuencias de asumir que el poder se divide así: la reina tiene el poder absoluto sobre el sexo de los huevos que ella pone, las obreras tienen poder absoluto sobre la alimentación de las larvas. Las obreras pueden así determinar cuántos de los óvulos femeninos disponibles deberán convertirse en reinas y cuántos en obreras. Tienen el poder de matar de hambre a los jóvenes de uno u otro sexo, pero tienen que trabajar dentro de las limitaciones de lo que la reina les da en forma de huevos. Las reinas tienen el poder de poner sus huevos en cualquier proporción de sexos que elijan, incluyendo la retención, total, de los huevos de uno u otro sexo. Pero, una vez puestos, los huevos están a merced de las obreras. Una reina puede, por ejemplo, jugar a la estrategia (en el sentido de la teoría de juegos) de poner solamente huevos masculinos en un año determinado. Reacias como podríamos esperar que fueran, las obreras no tienen más remedio que criar a sus hermanos. La reina, en este caso, puede anticiparse a ciertas estrategias de las obreras, tales como la 'preferencia a alimentar a las hermanas', simplemente porque ella 'juega' primero. Pero hay otras cosas que las obreras pueden hacer. 

     Usando la teoría de juegos, Grafen muestra que sólo ciertas estrategias de la reina son respuestas evolutivamente estables a las estrategias particulares de las obreras, y sólo ciertas estrategias de las  obreras son respuestas evolutivamente estables a las estrategias particulares de la reina. La pregunta interesante es: ¿Cuáles son las combinaciones evolutivamente estables de entre las estrategias de las obreras y la reina? Resulta que hay más de una respuesta, y no puede haber un máximo de tres estados evolutivamente estables para un determinado conjunto de parámetros. Las conclusiones particulares de Grafen no me conciernen aquí, aunque he de comentar que son curiosamente contrarias a la intuición. Lo que me concierne es que el estado evolutivamente estable de la población modelo depende de las asunciones que hagamos sobre el poder. Trivers y Hare contrastan dos posibles supuestos absolutos (potencia absoluta de la obrera frente a potencia absoluta de la reina). Grafen investigó una división plausible del poder (las reinas tienen el poder sobre los huevos, las obreras sobre la alimentación de las larvas). Pero, como ya he señalado, se podrían hacer muchas otras suposiciones sobre el poder. Cada supuesto genera diferentes predicciones sobre las proporciones de sexos evolutivamente estables, y el testar las predicciones, por tanto,  puede ser considerado como un aporte de pruebas sobre la disposición de poder en el nido.

viernes, 22 de mayo de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (76)

A primera vista, podría parecer que el argumento de Charnov no se aplica a los animales haplodiploides, y eso sería una lástima, ya que la mayoría de los insectos sociales son haplodiploides. Pero esta visión es errónea. El mismo Charnov lo muestra para el supuesto especial de que la población tenga una proporción de sexos no sesgada, en cuyo caso, incluso en las especies haplodiploides las hembras son indiferentes entre criar hermanos (r - la media de 3/4 y 1/4) y criar descendientes (r = 1/2 ). Pero Craig (1980) y Grafen (en preparación) muestran de forma independiente que Charnov ni siquiera tiene que asumir una proporción de sexos no sesgada. La potencial obrera aún es indiferente entre la crianza de sus hermanos y la crianza de sus hijos, en cualquier concebible proporción de sexos de la población. Así, supongamos que la proporción de sexos de la población tiene un sesgo femenino, {76} incluso supongamos que se ajusta a la predicción de 3:1 de Trivers y Hare. Puesto que la obrera está más estrechamente relacionada con su hermana que con su hermano o con su descendencia de uno u otro sexo, podría parecer que 'preferiría' críar hermanos en vez de hijos, dada una proporción de sexos femeninamente sesgada: ¿no está ganando sobre todo valiosas hermanas (además de sólo unos pocos hermanos relativamente sin valor) cuando opta por los hermanos? Pero este razonamiento deja de lado el relativamente gran valor reproductivo de los machos en una población, como consecuencia de su escasez. La obrera puede no estar estrechamente emparentada con cada uno de sus hermanos, pero si los machos son poco frecuentes en la población en su conjunto, cada uno de esos hermanos es correspondientemente muy probable que sea un antepasado de las generaciones futuras. 

     Las matemáticas confirman que la conclusión de Charnov es aún más general de lo que sugirió. En ambas especies diploides y haplodiploides, en cualquier proporción de sexos de la población, para una hembra individual es teóricamente indiferente si ella misma cría hermanos menores o sus hijos. Para ella, sin embargo, no es indiferente si su descendencia cría a sus propios hijos o a sus hermanos: ella prefiere que críen a sus hermanos (su descendencia) en vez de a la descendencia de sus hijos (sus nietos). Por tanto, si hay alguna cuestión de manipulación en esta situación, la manipulación parental sobre los hijos es más probable que la manipulación filial sobre los padres. 

     Podría parecer que las conclusiones de Charnov, Craig y Grafen contradicen radicalmente las de Trivers y Hare acerca de la proporción de sexos en los himenópteros sociales. La afirmación de que, en cualquier proporción de sexos, un himenóptero hembra es indiferente entre la crianza de sus hermanos y  la crianza de los hijos, suena equivalente a decir que también es indiferente a cuál es la proporción de sexos en su nido. Pero esto no es así. Sigue siendo cierto que, dado el supuesto de control de las obreras sobre la inversión en reproductores masculinos y femeninos, la proporción de sexos evolutivamente estable resultante no será necesariamente la misma que la proporción de sexos evolutivamente estable dado el control de la reina. En este sentido, una obrera no es indiferente a la proporción de sexos: ella también puede trabajar bien para cambiar la proporción de sexos lejos de lo que la reina está tratando de lograr. 

El análisis de Trivers y Hare sobre la naturaleza exacta del conflicto entre la reina y las obreras en la proporción de sexos se puede extender de forma que ilumine aún más el concepto de la manipulación (por ejemplo, Oster y Wilson 1978). La siguiente consideración se deriva de Grafen (en preparación). No voy a anticipar sus conclusiones al detalle, pero quiero enfatizar un principio que es explícito en su análisis, así como implícito en el de Trivers y Hare. La cuestión no es '¿Se ha alcanzado con éxito la "mejor" proporción de sexos?'.  Al contrario, hacemos un supuesto de trabajo de que la selección natural ha producido un resultado, dadas algunas limitaciones, y luego preguntamos cuáles son esas restricciones (véase el Capítulo 3). En el presente caso, seguimos a Trivers y Hare en el reconocimiento de que la proporción de sexos evolutivamente estable depende crucialmente de que las partes en la carrera de armamentos tengan poder práctico, pero reconocemos una serie más amplia de posibles disposiciones de poder que la que ellos hicieron. En {77} efecto, Trivers y Hare dedujeron las consecuencias de dos supuestos alternativos sobre el poder práctico; en primer lugar el supuesto de que la reina ejerce todo el poder, y en segundo lugar, la suposición de que las obreras ejercen todo el poder. Pero podrían hacerse muchos otros supuestos posibles, y cada uno daría lugar a una predicción diferente respecto a la proporción de sexos evolutivamente estable. De hecho, en otras partes de su artículo,  Trivers y Hare consideran algunos de ellos, por ejemplo, el supuesto de que las obreras sean capaces de poner sus propios huevos masculinos.

viernes, 15 de mayo de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (75)

     Esta controversia ha tenido el buen efecto de estimular las labores futuras. {75} Especialmente esclarecedor en el contexto de la carrera armamentista y la manipulación es el artículo de Charnov (1978), que se ocupa de los orígenes de la eusocialidad, y que introduce una versión potencialmente importante del principio de vida/cena. Su argumento funciona para los organismos diploides, además de para los haplodiploides. Voy a considerar primero el caso diploide. Considere una madre cuyos hijos mayores aún no han abandonado el nido cuando la próxima cría eclosiona. Cuando llega el momento de que salgan del nido y comiencen su propia reproducción, los jóvenes tienen la opción, en vez de eso, de quedarse y ayudar a criar a sus hermanos pequeños. Como ahora es bien sabido, en igualdad de todas las condiciones, para ese joven debería ser genéticamente indiferente la crianza de los hijos o la crianza completa de los hermanos (Hamilton, 1964a, b). Pero supongamos que la vieja madre pudiera ejercer algún poder manipulativo sobre la decisión de sus hijos mayores: ¿'Preferiría' que se fueran y criaran sus propias familias, o que se quedaran y criaran a su próxima camada? Obviamente, deberían permanecer y criar a su próxima camada, puesto que para ella los nietos son la mitad de valiosos que sus hijos. (El argumento tal y como está es incompleto. Si ella manipuló a todos sus hijos para toda su vida en la crianza de aún más crías obreras no-reproductoras, su línea germinal podría desaparecer. Debemos asumir que manipula algunos descendientes del mismo tipo genético en desarrollarse como reproductoras, y otros en desarrollarse como obreras.) La selección, entonces, favorecerá esas tendencias manipuladoras en los padres. 

     Normalmente, cuando postulamos la selección en favor de la manipulación, tenemos que hablar obligatoriamente de la contra-selección en la víctima para resistir la manipulación. La belleza del argumento de Charnov es que en este caso no habrá contra-selección. La 'carrera de armamentos' es un paseo porque un bando, por así decirlo, ni siquiera lo intenta. La descendencia que está siendo manipulada, como ya hemos visto, es indiferente a si crían a sus jóvenes hermanos o a sus propios hijos (suponiendo de nuevo todas las otras circunstancias iguales). Por tanto, aunque podemos postular la manipulación inversa de los padres por la descendencia, ésta se ve obligatoriamente superada, al menos en el ejemplo simple visualizado por Charnov, por la manipulación de los padres a la descendencia. Esta es una asimetría que se añade a la lista de las ventajas de los padres ofrecida por Alexander (1974), pero en general me parece que es más convincente que cualquier otra de la lista.

viernes, 8 de mayo de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (74)

La incapacidad de los esclavos para evolucionar contra-adaptaciones fue invocada originalmente por Trivers y Hare (1976), en su teoría de la carrera armamentista en la proporción de sexos de los himenópteros sociales. Esta es una de las mejor conocidas entre las recientes discusiones de una carrera armamentista en particular, y vale la pena considerarla más a fondo. Abundando en las ideas de Fisher (1930a) y Hamilton (1972), Trivers y Hare razonaron que la proporción de sexos evolutivamente estable en especies de hormigas con una única reina reproductora por nido no puede ser predicha simplemente. Si se supone que la reina tiene todo el poder sobre el sexo de la descendencia reproductiva (reinas jóvenes y machos), la relación estable de inversión económica en los reproductores masculinos y femeninos es 1:1. Si, por otra parte, se supone que las obreras no reproductivas reservan toda la energía de la inversión en los jóvenes, la relación estable será 3:1 en favor de las hembras, en última instancia, por el sistema genético haplodiploide. Hay, por tanto, un conflicto potencial entre la reina y las obreras. Trivers y Hare revisaron los  datos disponibles, reconocidamente imperfectos, y reportaron un buen ajuste promedio para la predicción de 3:1, de donde llegaron a la conclusión de que habían encontrado evidencia del poder de las obreras para ganar la batalla contra el poder de la reina. Fue un intento inteligente de usar datos auténticos para probar una hipótesis de un tipo que a menudo es criticado como no comprobable, pero, como otros primeros intentos innovadores, es fácil encontrarles fallos. Alexander y Sherman (1977) se quejaron del manejo de datos de Trivers y Hare, y además sugirieron una explicación alternativa para la proporción de sexos con sesgo femenino común en las hormigas. Su explicación ('competición de pareja local'), como la de Trivers y Hare, se derivaba de la original de Hamilton, en este caso su artículo sobre ratios sexuales extraordinarios (1967).

viernes, 1 de mayo de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (73)

     Aquí puede hacerse una analogía con la rana híbrida Rana esculenta (White 1978). Esta rana común europea, la rana comestible de los restaurantes franceses, no es una especie en el sentido normal de la palabra. Los individuos de la 'especie' son realmente diversos tipos de híbridos entre otras dos especies, Rana ridibunda y R. lessonae. Hay dos diferentes formas diploides y dos diferentes formas triploides de R. esculenta. Por simplicidad, consideraré sólo una de las formas diploides, pero el argumento es válido para todas las variedades. Estas ranas conviven con R. lessonae. Su cariotipo diploide consiste en un conjunto de cromosomas de lessonae y un juego de cromosomas de ridibunda. En la meiosis se desechan los cromosomas lessonae y se producen gametos ridibunda puros. Se aparean con individuos lessonae, restaurando así el genotipo híbrido en la próxima generación. En esta carrera de los cuerpos de Rana esculenta, por lo tanto, los genes ridibunda son replicadores de la línea germinal, y los genes lessonae son replicadores sin salida. Los replicadores sin salida pueden ejercer efectos fenotípicos. Incluso pueden ser seleccionados naturalmente. Pero las consecuencias de esa selección natural son irrelevantes para la evolución (véase el capítulo 5). Para hacer el siguiente párrafo más fácil de seguir, voy a llamar a R. esculenta H (para híbrida), R. ridibunda G (para la línea germinal) y R. lessonae D (para sin salida, aunque hay que recordar que los genes 'D' son replicadores sin salida sólo cuando están en las ranas H; cuando están en las ranas 'D' son replicadores normales de la línea germinal).

     Ahora, considere un gen en el acervo génico D, que ejerce un efecto sobre los cuerpos D para hacerlos rehusar a aparearse con H. Tal gen debe ser favorecido por la selección natural sobre su alelo H-tolerante, ya que este último tiende a terminar en cuerpos de H de la próxima generación, y se descartará la meiosis. Los
genes G no se descartan en la meiosis, y tenderán a ser seleccionados si influyen en los cuerpos H para que superen la resistencia de los individuos D en aparearse con ellos. Por tanto, deberíamos ver una carrera armamentista entre los genes G {74} que actúan sobre los cuerpos de H, y los genes D que actúan sobre los cuerpos D. En los respectivos cuerpos, ambos conjuntos de genes son replicadores de línea germinal. Pero ¿qué pasa con los genes D que actúan sobre los cuerpos H? Deben tener tan poderosa influencia sobre los fenotipos H como sobre los genes G, ya que constituyen exactamente la mitad del genoma H. Ingenuamente, podríamos esperar que llevaran su carrera armamentista contra los genes G extendiéndose a los cuerpos de H que los comparten. Pero en los cuerpos H, esos genes D están en la misma posición que las hormigas que han sido tomadas como esclavas. Cualquier adaptación que medie en el cuerpo H no se puede transmitir a la siguiente generación; en cuanto a los gametos producidos por el individuo H, independientemente de cómo sea su fenotipo en desarrollo, y de hecho su supervivencia, pueden haber sido influenciados por los genes D, son estrictamente gametos G. Al igual que las hormigas potencialmente esclavas pueden seleccionarse para resistirse a ser tomadas en cautiverio, mientras que todavía están en su nido hogar, pero no se seleccionarse para subvertir el nido esclavista una vez que están en él, así los genes D pueden  seleccionarse para influir en los cuerpos D de manera que se resistan a ser incorporados en los genomas H primero, pero una vez así incorporados ya no están en la selección, a pesar de que todavía pueden tener efectos fenotípicos. Pierden la carrera de armamentos, ya que son un callejón sin salida. Un argumento similar podría hacerse para los peces de la 'especie' híbrida Poeciliopsis monacha-occidentalis (Maynard Smith 1978a).

viernes, 24 de abril de 2015

Capítulo 4.- Carreras Armamentistas y Manipulación (72)

   Otras especies de hormigas parásitas utilizan un sistema diferente. En lugar de enviar reinas para implantar sus huevos en los nidos hospedadores y usar allí las obreras hospedadoras, se traen las obreras hospedadoras a sus propios nidos. Son las llamadas hormigas esclavistas. Las especies esclavistas tienen obreras, pero estas obreras dedican parte, o en algunos casos la totalidad, de su energía en expediciones esclavistas. Atacan nidos de otras especies y se llevan larvas y pupas. Posteriormente, éstas se incuban en el nido de las esclavistas, donde trabajan normalmente, forrajean y cuidan las crías, sin 'darse cuenta' de que son, en realidad, esclavas. Supuestamente, la ventaja de la forma de vida esclavista es que se ahorra la mayor parte del coste de alimentar a la fuerza de trabajo en la etapa larval. Ese coste es asumido por la colonia de origen de la que se tomaron las pupas esclavas. 

    El hábito esclavista es interesante desde el punto de vista presente, porque plantea una asimetría inusual en una carreta armamentista. Se supone que hay una carrera armamentista entre las especies esclavistas y  las especies esclavas. Deberían esperarse adaptaciones para combatir la esclavitud en las especies que son víctimas de las redadas de esclavos, por ejemplo unas mandíbulas agrandadas de las hormigas soldado para la eliminación de las invasoras. ¿Pero no sería sin duda la contramedida más evidente que los esclavos podrían tomar simplemente retener su fuerza de trabajo en el nido de los traficantes de esclavos, o matar las crías esclavistas en lugar de alimentarlas? Parece la contramedida obvia, pero hay obstáculos formidables para su evolución. Considere una adaptación a ir a la huelga, a negarse a trabajar en el nido de las esclavistas. Por supuesto, las obreras esclavas tendrían que tener algún sistema para reconocer que se habían incubado en un nido extranjero, pero eso no debería ser difícil en principio. El problema surge cuando pensamos en detalle en cómo se transmitirían las adaptaciones. 

   Dado que las obreras no se reproducen, todas las adaptaciones de las obreras, en cualquier especie de insecto social, han de ser transmitidas por sus parientes reproductivos. Normalmente esto no presenta problemas insuperables, porque las obreras ayudan directamente a sus propios familiares reproductivos, con lo que los genes que dan lugar a adaptaciones de las obreras asisten directamente las copias de sí mismos en las reproductoras. Pero tomemos el ejemplo de un gen mutante que cause que las obreras esclavas vayan a la huelga. Tal vez saboteara muy eficazmente los nidos de las esclavistas, posiblemente lo eliminara por completo. ¿Y con qué resultado ? El área ahora contiene un nido menos de esclavistas, probablemente una buena cosa para todos los nidos de víctimas potenciales de la zona, no sólo el nido de procedencia de los esclavos rebeldes, sino los nidos que contienen genes no huelguistas también. El mismo tipo de problema se plantea en el caso general de la propagación del comportamiento 'rencoroso' (Hamilton 1970; Knowlton y Parker 1979).

    La única vía fácil de que los genes de la huelga puedan transmitirse preferentemente es beneficiar, de forma selectiva, el propio nido hogar de las huelguistas, el nido que dejaron atrás y en el que están siendo criados sus propios parientes reproductivos. Esto podría ocurrir si las esclavistas habitualmente volvieran a hacer repetidas incursiones {73} al  mismo nido, pero de otra manera debemos concluir que las adaptaciones antiesclavistas deben limitarse al período anterior a que las pupas de esclavas han dejado su nido hogar. Una vez que las esclavas han llegado al nido esclavista, se retiran de manera efectiva de la carrera de armamentos, ya que ya no tienen ningún poder para influir en el éxito de sus familiares reproductivos. Las esclavistas pueden desarrollar adaptaciones manipulativas de cualquier grado de sofisticación, físicas o químicas, feromonas o drogas de gran alcance, y las esclavas no pueden evolucionar contramedidas.  

   En realidad, el hecho real de que las esclavas no puedan evolucionar contramedidas tenderá a reducir la probabilidad de que las técnicas de manipulación desarrolladas por las esclavistas sean muy sofisticadas: el hecho de que las esclavas no puedan tomar represalias, en un sentido evolutivo, significa que las esclavistas no necesitan consumir recursos costosos en elaboradas y sofisticadas adaptaciones de manipulación, ya que basta con las simples y baratas. El ejemplo de la esclavitud en las hormigas es más bien especial, pero ilustra un sentido particularmente interesante en el que puede decirse que uno de los lados en la carrera de armamentos pierde por completo .