A
menudo se me ha sugerido que una objeción fatal para un seleccionismo del replicador
es la existencia de entrecruzamiento intra-cistrón. Si
los cromosomas fueran como collares de cuentas, el argumento funcionaría; con
el entrecruzamiento siempre rompiendo el collar entre las cuentas y no dentro de
ellas, podrías esperar definir replicadores discretos en
la población, conteniendo un número entero de cistrones. Pero puesto que el cruce puede ocurrir en cualquier parte (Watson 1976), no
sólo entre las cuentas, toda esperanza de definir unidades discretas
desaparece.
Esta crítica subestima la elasticidad que se le permite al concepto de replicador para el propósito por el que fue acuñado. Como
acabo de mostrar, no estamos buscando unidades específicas, sino
trozos de cromosoma de longitud indeterminada que se conviertan en más o
menos numerosos que las alternativas de la misma longitud. Por
otra parte, como Mark Ridley me recuerda, la mayoría de los cruces
intra-cistrón son, en todo caso, indistinguibles en sus efectos de
los cruces inter-cistrón. Obviamente,
si el cistrón en cuestión resulta ser homocigoto, emparejado en la
meiosis con un alelo idéntico, los dos conjuntos de material genético
intercambiados en un cruce serán idénticos, como si el cruce nunca hubiera sucedido. Si
los cistrones afectados son heterocigotos, que difieren en un locus del
nucleótido, cualquier cruce intra-cistrón que ocurra al
'norte' del nucleótido heterocigoto será indistinguible de uno en el
límite 'norte' del cistrón; cualquier cruce intra-cistrón 'sur' del nucleótido heterocigoto será indistinguible de uno en el límite 'sur' del cistrón. Sólo
si los cistrones difieren en dos loci, y el cruce se produce entre
ellos, será identificable como un cruce intra-cistrón. La cuestión general es que no importa dónde ocurren en particular los cruces en relación con los límites del cistrón. Lo que importa es dónde se producen los cruces en relación a los nucleótidos heterocigotos. Si , por ejemplo, una secuencia de seis cistrones adyacentes resulta
ser homocigota a través de toda una población de cría, un cruce en
cualquier lugar dentro de los seis será equivalente exactamente en su
efecto a un cruce en cada extremo de los seis.
La selección natural puede provocar cambios en la frecuencia sólo en los loci de nucleótidos que son heterocigotos en la población. Si
hay grandes trozos intervinientes de secuencias de nucleótidos que no
difieran entre los individuos, estos no pueden estar sujetos a
selección natural, pues no hay nada que elegir entre ellos. La selección natural debe enfocar su atención en los nucleótidos heterocigotos. Son
los cambios a nivel de un solo nucleótido los que son responsables de los
cambios fenotípicos evolutivamente significativos, aunque, por
supuesto, el resto invariable del genoma es absolutamente imprescindible para producir un
fenotipo. ¿Hemos, pues, llegado a un absurdamente reduccionista reductio ad absurdum? ¿Vamos a escribir un libro llamado El Nucleótido Egoísta? ¿la adenina está implicada, en una lucha implacable contra la citosina, por la posesión del locus 30.004?
viernes, 28 de agosto de 2015

viernes, 21 de agosto de 2015
Capítulo 5.- El Replicador Activo de la Línea Germinal (89)
No haré
ningún intento de especificar qué longitud exactamente puede permitirse que tenga una parte del
cromosoma antes de que deje de considerarse
útil como replicador. No hay una regla inflexible, y no la necesitamos. Depende de la fuerza de la presión selectiva implicada. No
buscamos una definición absolutamente rígida, sino una especie de
definición de desvanecimiento progresivo, como la definición de "grande" o "antiguo". Si
la presión de selección que estamos discutiendo es muy fuerte, es
decir, si un replicador hace que sus poseedores tengan muchas más probabilidades
de sobrevivir y reproducirse que sus alelos, el replicador puede
ser muy grande y aún ser considerado útil como una unidad seleccionada naturalmente. Por otro lado, si la diferencia en las consecuencias de supervivencia
entre un replicador putativo y sus alelos es casi negligible,
los replicadores en discusión tendrían que ser muy pequeños si la
diferencia en sus valores de supervivencia se hiciese notar. Esta
es la razón de ser de la definición de Williams (1966, p 25): 'En
la teoría de la evolución, un gen podría ser definido como cualquier
información hereditaria para la cual existe un sesgo de selección
favorable o desfavorable igual a varias o muchas veces su tasa de cambio
endógeno'.
La posibilidad de un fuerte desequilibrio de unión (Clegg 1978) no debilita el caso. Simplemente aumenta el tamaño de la porción de genoma que podemos tratar de manera útil como un replicador. Si, lo que parece dudoso, el desequilibrio de unión es tan fuerte que 'las poblaciones contienen sólo unos pocos tipos gaméticos' (Lewontin 1974, p. 312), el replicador efectivo será un gran trozo de ADN. Cuando lo que Lewontin llama LC, la 'longitud característica' ( la 'distancia sobre la cual el acoplamiento es efectivo'), es sólo 'una fracción de la longitud del cromosoma, cada gen está en equilibrio de unión sólo con sus vecinos, pero está organizado esencialmente independiente de otros genes más lejanos. La longitud característica es, en cierto sentido, la unidad de la evolución, puesto que los genes dentro de ella están altamente correlacionados. No obstante, el concepto es muy sutil. Esto no significa que el genoma se divida en trozos discretos adyacentes de longitud LC. Cada locus es el centro de tal segmento correlacionado y evoluciona en vinculación con los genes cerca de él' (Lewontin 1974).
Del mismo modo, Slatkin (1972) escribió que 'Está claro que cuando un desequilibrio de vínculo permanente se mantiene en una población, las interacciones de orden superior son importantes y el cromosoma tiende a actuar como una unidad. El grado en que esto es cierto en cualquier sistema dado es una medida de si la unidad de selección es el gen o el cromosoma, o, más exactamente, qué partes del genoma puede decirse que están actuando al unísono'. Y Templeton et al. (1976) escribió que '... la unidad de selección es una función, en parte, de la intensidad de selección: cuanto más intensa es la selección, más todo el genoma tiende a mantenerse junto como una unidad'. Fue en este espíritu que de manera juguetona {90} consideré titular una obra anterior El gran pedazo de cromosma ligeramente egoísta y el pequeño pedazo de cromosoma incluso más egoísta (Dawkins 1976a, p . 35).
viernes, 14 de agosto de 2015
Capítulo 5.- El Replicador Activo de la Línea Germinal (88)
Esto
depende de la respuesta a otra pregunta: '¿útil para qué?' La razón por la que un
replicador es interesante para los darwinistas es que es potencialmente
inmortal, o al menos de muy larga duración en forma de copias. Un
{88} replicador exitoso es aquel que tiene éxito en durar, en
forma de copias, por un largo tiempo medido en generaciones, y tiene
éxito en la propagación de muchas copias de sí mismo. Un
replicador sin éxito es aquel que potencialmente podría haber tenido una
larga vida, pero en realidad no logró sobrevivir, pongamos porque causó
que los sucesivos cuerpos en los que se encontraba no fueran sexualmente
atractivos. Podemos aplicar los términos de 'éxitoso' y 'fallido' a cualquier parte de cromosoma definida arbitrariamente. Su
éxito se mide en relación a sus alelos, y, si hay la heterocigosidad
del locus replicador en la población, la selección natural cambiará las frecuencias relativas de los replicadores alelomorfos en
la población. Pero
si la parte de cromosoma elegida arbitrariamente es muy larga, ni
siquiera es potencialmente longeva en su presente forma, ya
que es probable que se divida por cruzamiento en una generación
dada, independientemente de lo exitoso que pueda ser en hacer que un cuerpo sobreviva y se reproduzca. Para
llevarlo a un extremo, si el replicador potencial que consideramos es un
cromosoma completo, la diferencia entre un cromosoma 'exitoso'
y otro sin éxito no es de importancia, ya que ambos están casi obligados, en cualquier caso, a dividirse por
entrecruzamiento antes de la próxima generación: su 'fidelidad' es cero.
Esto puede plantearse de otra forma. Una longitud de cromosoma definida arbitrariamente, o un potencial replicador, puede decirse que tiene una vida media esperada, medida en generaciones. Dos tipos de factores afectarán esta media de vida. En primer lugar, los replicadores cuyos efectos fenotípicos los hagan exitosos en sus asuntos de propagarse a sí mismos tenderán a tener una vida media larga. Los replicadores con vidas medias más longevas que sus alelos vendrán a predominar en la población, y éste es el conocido proceso de la selección natural. Pero si dejamos la presión de selección a un lado, podemos decir algo acerca de la vida media de un replicador en función únicamente de su longitud. Si el tramo del cromosoma que elegimos definir como nuestro replicador de interés es largo, tenderá a tener una vida media más corta que un replicador más corto, simplemente porque es más probable que se rompa por el entrecruzamiento. Rotundamente, una porción muy larga del cromosoma deja de merecer el título de replicador.
Un corolario es que una porción larga del cromosoma, incluso si tiene éxito en términos de sus efectos fenotípicos, no estará representada en muchas copias en la población. Exceptuando el cromosoma Y, y dependiendo de las tasas de cruce, parece poco probable que yo comparta ningún cromosoma entero con ninguna otra persona. Yo seguramente comparto muchas pequeñas porciones de cromosomas con otros, y si elegimos porciones de nosotros lo suficientemente pequeñas, la probabilidad de ser compartidas se convierte en muy alta. Por consiguiente, normalmente no es útil hablar de selección entre cromosomas, ya que cada cromosoma es probablemente único. La selección natural es el proceso por el cual los replicadores cambian en 'frecuencia entre' la población con respecto a sus alelos. Si el replicador en cuestión es tan grande que es probablemente único, no puede decirse que tiene una 'frecuencia' que cambiar. Debemos elegir nuestra porción arbitraria del cromosoma de modo que sea lo suficientemente pequeña como para durar, al menos potencialmente, muchas generaciones antes de ser {89} dividida por entrecruzamiento; lo suficientemente pequeña como para tener una 'frecuencia' que pueda ser cambiada por selección natural. ¿Es posible elegirla demasiado pequeña? Volveré sobre este tema más adelante, después de una aproximación a él desde otra dirección.
viernes, 7 de agosto de 2015
Capítulo 5.- El Replicador Activo de la Línea Germinal (87)
La palabra replicador está deliberadamente definida de manera general, por lo que no tiene ni siquiera que referirse al ADN. Soy, en efecto, bastante comprensivo hacia la idea de que la cultura
humana proporciona un nuevo medio en el que un tipo completamente
diferente de selección de replicadores puede continuar. En
el próximo capítulo vamos a examinar brevemente este asunto, y también
las pretensiones de considerar los acervos génicos de las especies como replicadores en un proceso de selección a gran escala
que rige las tendencias 'macroevolutivas'. Pero en el resto de este capítulo nos ocuparemos sólo de fragmentos
genéticos, y 'replicador' se utilizará como una abreviatura de 'replicador
genético'.
En principio, podemos considerar cualquier porción del cromosoma como un posible candidato al título de replicador. La selección natural puede ser vista normalmente con seguridad como la supervivencia diferencial de replicadores en relación con sus alelos. La palabra alelo hoy en día es utilizada habitualmente para cistrones, pero claramente es fácil, y está en el espíritu de este capítulo, generalizarla para cualquier porción del cromosoma. Si nos fijamos en una porción del cromosoma de cinco cistrones de longitud, sus alelos son los grupos alternativos de cinco cistrones que existen en los loci homólogos de todos los cromosomas de la población. Un alelo de una secuencia arbitraria de veintiséis codones es una secuencia homóloga alternativa de veintiséis codones en alguna parte de la población. Cualquier tramo de ADN, comenzando y terminando en puntos elegidos arbitrariamente en el cromosoma, puede considerarse que compite con los tramos alelomorfos para la región del cromosoma que se trate. De ello se desprende, además, que podemos generalizar los términos homocigoto y heterocigoto. Después de haber elegido arbitrariamente la longitud del cromosoma como nuestro replicador candidato, nos fijamos en el cromosoma homólogo en el mismo individuo diploide. Si los dos cromosomas son idénticos en toda la longitud del replicador, el individuo es homocigoto para ese replicador, de lo contrario, es heterocigoto.
Cuando dije 'una porción de cromosoma elegida arbitrariamente', realmente quise decir arbitrariamente. Los veintiséis codones que elegí bien podrían abarcar el espacio entre dos cistrones. La secuencia aún se ajusta potencialmente a la definición de replicador, aún es posible pensar en ella como conteniendo alelos, y aún puede ser pensada como homocigota o heterocigota de la correspondiente parte del cromosoma homólogo en un genotipo diploide. Luego éste es nuestro replicador candidato. Sin embargo, un candidato debe ser considerado como un replicador real sólo si posee algún grado mínimo de longevidad / fecundidad / fidelidad (puede haber compensaciones entre las tres). En igualdad de condiciones, es evidente que los candidatos más grandes tienen una menor longevidad / fecundidad / fidelidad que los más pequeños, ya que son más vulnerables a ser rotos por eventos de recombinación. Por lo tanto ¿Cuánto de grande y de pequeño ha de ser una parte del cromosoma para que sea útil tratarlo como un replicador?
viernes, 31 de julio de 2015
Capítulo 5.- El Replicador Activo de la Línea Germinal (86)
Tal
actitud maternalmente protectora hacia un término técnico usurpado
bastante recientemente no es universal entre los biólogos moleculares, y uno de los más grandes ha escrito recientemente que 'la
teoría del "gen egoísta" tendrá que {86} extenderse a cualquier
tramo de ADN' (Crick 1979). Y, como hemos visto al principio de este capítulo, otro biólogo
molecular de primera fila, Seymour Benzer (1957), reconoció las
deficiencias del concepto de gen tradicional, pero en vez de coger la misma palabra tradicional de gen para un uso molecular particular, eligió el camino más modesto de acuñar un conjunto útil de nuevos
términos -como mutón, recón y cistrón, al que podemos añadir el optimón. Benzer
reconoció que sus tres unidades tenían pretensiones de ser
consideradas como equivalentes al gen de la literatura anterior. La elevación al honor sin concesiones del cistrón por parte de Stent es arbitraria, aunque lo cierto es que es bastante común. Una
visión más equilibrada la dio el añorado W.T. Keeton (1980):
'Puede parecer extraño que los genetistas continúen empleando diferentes
definiciones de gen para diferentes propósitos'. El hecho es que, en la etapa actual de los conocimientos, una definición es más útil en un contexto y otra en otro contexto; una terminología rígida sólo obstaculizaría la formulación de ideas actuales y los objetivos de la investigación. Lewontin
(1970b), también, está en lo correcto cuando dice que 'son sólo los cromosomas los
que obedecen la Ley de la Distribución Independiente de Mendel, mientras que es sólo la
base de nucleótidos la que es indivisible. Los codones y los genes [cistrones] se encuentran en medio, que no
es ni unitario ni independiente en su comportamiento en la meiosis.
Pero no nos pongamos nerviosos con la terminología. Los significados de las palabras son importantes, aunque no lo suficiente para justificar la sensación de malestar que a veces provocan, como en el presente caso de Stent (y también como en la denuncia apasionada y aparentemente sincera de Stent hacia mi seguimineto de la moda actual estándar de redefinir el 'egoísmo' y el 'altruismo' en sentidos no subjetivos -ver Dawkins, 1981, para una respuesta a una crítica similar). Estoy feliz de reemplazar 'gen' por 'replicador genético' donde haya alguna duda.
Al margen de los atroces pecados terminológicos, Stent menciona el más importante argumento de que mi unidad no está delimitada con precisión en la forma en que lo está el cistrón. Bueno, tal vez debería decir 'en la forma en que el cistrón una vez parecía estar', por el reciente descubrimiento de cistrones 'incrustados' en el virus sigmaX174, y de los 'exones' rodeando 'intrones' que deben provocar un poco de incomodidad a cualquiera que le gusten sus rígidas unidades. Crick (1979) expresa bien el sentido de la novedad: 'En los últimos 2 años se ha producido una pequeña revolución en la genética molecular. Cuando llegué a California, en septiembre de 1976, no tenía ni idea de que un gen típico podría ser dividido en varios pedazos, y dudo que nadie la tuviera'. Crick agrega significativamente a la palabra gen una nota a pie de página: 'A lo largo de este artículo, he utilizado deliberadamente la palabra "gen" en un sentido amplio, ya que en este momento cualquier definición precisa sería prematura'. Mi unidad de selección, tanto si la llamé gen (Dawkins 1976a) o replicador (1978a), nunca tuvo pretensiones de unidad en cualquier sentido. Para el propósito con el que fue definida, su unidad no es una consideración importante, aunque estoy dispuesto a reconocer que podría ser importante para otros fines. {87}
viernes, 24 de julio de 2015
Capítulo 5.- El Replicador Activo de la Línea Germinal (85)
Puede decirse que un
replicador 'se beneficia' de cualquier cosa que aumente el
número de sus copias descendientes ('de la línea germinal'). En
la medida en que los replicadores activos de la línea germinal se
beneficien de la supervivencia de los organismos en los que se establece,
podemos esperar ver adaptaciones interpretables como para la supervivencia de los cuerpos. Un gran número de adaptaciones son de este tipo. En
la medida en que {85} los replicadores activos de la línea germinal se
beneficien de la supervivencia de otros organismos
en los que se asientan, podemos esperar ver 'altruismo', cuidado parental, etc. En la medida en que los replicadores activos la línea germinal se beneficien de
la supervivencia del grupo de individuos en los que se asientan, más
allá de los dos efectos que acabamos de mencionar, podemos esperar ver adaptaciones para la preservación del grupo. Pero todas estas adaptaciones existirán, fundamentalmente, a través de la supervivencia diferencial del replicador. El beneficiario básico de cualquier adaptación es el replicador activo de la línea germinal, el optimón.
Es importante no olvidar la condición de' línea germinal' en la especificación del optimón. Este es el motivo de la analogía del átomo de oro de Hull. Krebs (1977) y yo ( Dawkins 1979a) hemos criticado previamente a Barash (1977) por sugerir que las obreras estériles en insectos cuidan de otras obreras porque comparten genes con ellas. Yo no insistiría en esto de nuevo, dado que el error no se ha repetido recientemente en la prensa (Barash 1978; Kirk 1980). Sería más correcto decir que las obreras cuidan de sus hermanas reproductivas que llevan copias de la línea germinal de los genes cuidadores. Si se preocupan por otras obreras, es porque esas otras obreras son propensas a trabajar en nombre de los mismos reproductores (de los que también son familiares), no porque las obreras sean parientes entre sí. Los genes de las obreras pueden ser activos, pero son sin salida, no replicadores de la línea germinal.
Ningún proceso de copia es infalible. No forma parte de la definición de un replicador el que sus copias deban ser todas perfectas. Es fundamental para la idea de un replicador el que cuando se produce un error o 'mutación', se transmita a las copias futuras: la mutación lleva a la existencia de un nuevo tipo de replicador que se cría efectivamente hasta que haya otra mutación. Cuando se fotocopia una hoja de papel, puede aparecer una mancha en la copia que no estaba presente en el original. Si la propia fotocopia se copia, la mancha se incorpora a la segunda copia (que también puede introducir una nueva mancha a su vez). El principio importante es que, en una cadena de replicadores, los errores son acumulativos.
He utilizado previamente la palabra 'gen' en el mismo sentido que yo ahora utilizaría 'replicador genético', para referirme a un fragmento genético que, por todo lo que sirve como unidad de selección, no tiene límites fijados rígidamente. Esto no ha contado con una aprobación uniforme. El eminente biólogo molecular Gunther Stent (1977) escribió que 'uno de los grandes triunfos de la biología del siglo XX fue la eventual identificación inequívoca del factor hereditario mendeliano, o gen ... como esa unidad de material genético ... en la que se codifica una secuencia de aminoácidos de una proteína particular'. Por lo tanto, Stent se opuso violentamente a mi adopción del equivalente a la definición de Williams (1966) del gen como 'aquello que se separa y recombina con una frecuencia apreciable', y lo describió como 'un pecado terminológico atroz'.
viernes, 17 de julio de 2015
Capítulo 5.- El Replicador Activo de la Línea Germinal (84)
Como he dicho, la distinción activo/pasivo trasciende la distinción de línea germinal/sin-salida. Cualquiera de las cuatro combinaciones son concebibles. Particular
interés despierta una de las cuatro, el replicador
activo de la línea germinal, ya que es, en mi opinión, el 'optimon', la unidad en beneficio
de la cual existen adaptaciones. La
razón por la que los replicadores activos de la línea germinal son unidades
importantes es que, en cualquier parte del universo que se encuentren,
es probable que se conviertan en la base para la selección natural, y por
lo tanto para la evolución. Si
existen replicadores que estén activos, las variantes de ellos con
ciertos efectos fenotípicos suelen sobre-replicar a los que tienen otros
efectos fenotípicos. Si,
además, son replicadores de la línea germinal, estos cambios en la
frecuencia relativa pueden tener, a largo plazo, un impacto evolutivo. El
mundo tiende automáticamente a poblarse por los replicadores de la
línea germinal cuyos efectos fenotípicos activos son los que
aseguren su replicación exitosa. Son estos efectos fenotípicos los que vemos como adaptaciones para la supervivencia. Cuando nos preguntamos qué supervivientes se aseguran la adaptación, la
respuesta fundamental tiene que ser no el grupo, ni el organismo individual, sino los propios replicadores pertinentes.
He resumido previamente las cualidades de un replicador exitoso 'en un lema que recuerda la Revolución Francesa: Longevidad, Fecundidad, Fidelidad' (Dawkins 1978a). Hull (1980b) explica el punto con claridad.
He resumido previamente las cualidades de un replicador exitoso 'en un lema que recuerda la Revolución Francesa: Longevidad, Fecundidad, Fidelidad' (Dawkins 1978a). Hull (1980b) explica el punto con claridad.
"Los replicantes no necesitan durar siempre. Sólo necesitan durar el tiempo suficiente para producir replicadores adicionales [fecundidad] que conserven su estructura en gran parte intacta [fidelidad]. La longevidad relevante se refiere a la retención de la estructura a través de la descendencia. Algunas entidades, aunque estructuralmente similares, no son copias porque no están relacionadas por descendencia. Por ejemplo, aunque los átomos de oro son estructuralmente similares, no son copias los unos de los otros, porque los átomos de oro no dan lugar a otros átomos de oro. Por el contrario, una gran molécula puede descomponerse en moléculas cada vez más pequeñas en cuanto se separan sus enlaces cuaternarios, terciarios y secundarios. Aunque la descendencia está presente, estas moléculas cada vez más pequeñas no pueden considerarse como copias porque carecen de la similitud estructural requerida."
viernes, 10 de julio de 2015
Capítulo 5.- El Replicador Activo de la Línea Germinal (83)
Yo defino un replicador como cualquier cosa en el universo de la cual se hacen copias. Ejemplos son una molécula de ADN, y una hoja de papel que se haya fotocopiado. Los replicadores pueden clasificarse de dos formas. Pueden ser 'activos' o 'pasivos', y, trascendiendo esta clasificación, pueden ser replicadores de 'línea germinal' o 'sin salida'.
Un replicador activo es cualquier replicador cuya naturaleza tiene cierta influencia sobre su probabilidad de ser copiado. Por ejemplo, una molécula de ADN, a través de la síntesis de proteínas, ejerce efectos fenotípicos que influyen en si es copiada: de esto trata la selección natural. Un replicador pasivo es un replicador cuya naturaleza no tiene ninguna influencia sobre su probabilidad de ser copiado. A primera vista, una hoja de papel fotocopiada parece ser un ejemplo, pero algunos podrían argumentar que su naturaleza sí que influye en si es copiada, por lo que es activa: los seres humanos son más propensos a fotocopiar unas hojas de papel que otras, debido a lo que está escrito en ellas, y estos ejemplares son, a su vez, relativamente propensos a ser copiados de nuevo. Una sección de ADN que nunca se transcribe podría ser un auténtico ejemplo de un replicador pasivo (pero véase el capítulo 9 sobre el ADN egoísta).
Un replicador de línea germinal (que puede ser activo o pasivo) es un replicador que es el ancestro potencial de una línea indefinidamente larga de replicadores descendientes. Un gen en un gameto es un replicador de la línea germinal. Así es un gen en una de las células de la línea germinal de un cuerpo, un ancestro mitótico directo de un gameto. Así es cualquier gen en Amoeba proteus. Así es una molécula de ARN en uno de los tubos de ensayo de Orgel (1979). Un replicador sin salida (que también puede ser activo o pasivo) es un replicador que puede ser copiado un número finito de veces, dando lugar a una cadena corta de descendientes, pero que definitivamente no es el ancestro potencial de una línea indefinidamente larga de descendientes. La mayor parte de las moléculas de ADN en nuestro cuerpo son replicadores sin salida. Pueden ser los ancestros de algunas decenas de generaciones de replicación mitótica, pero definitivamente no serán antepasados a largo plazo.
Una molécula de ADN en la línea germinal de un individuo que muera joven, o que de otra manera falle en reproducirse, no debería ser llamada un replicador sin salida. Tales líneas germinales son, como resultan ser, terminales. Fallan en lo que metafóricamente puede llamarse su aspiración a la inmortalidad. Un fallo diferencial de este tipo es lo que entendemos por selección natural. Pero tanto si tiene éxito en la práctica o no, cualquier replicador de la línea germinal es potencialmente inmortal. Aspira a la inmortalidad, pero en la práctica está en peligro de fracaso. Todas las moléculas de ADN de las obreras de insectos sociales totalmente estériles son, sin embargo, verdaderos replicadores sin salida. Ni siquiera aspiran a replicarse indefinidamente. Las obreras carecen de una línea germinal, no por una cuestión de mala suerte, sino por una cuestión de diseño. En este sentido, se parecen a las células hepáticas humanas más que a las espermatogonias de un ser humano que sea célibe. Puede haber {84} casos intermedios extraños, por ejemplo, la obrera 'estéril' que se convierte en facultativamente fértil si su madre muere, y la hoja de Streptocarpus que no se espera que propague una nueva planta, pero que puede hacerlo si se planta como un esqueje. Pero esto se está poniendo teológico: no nos preocupemos de cuántos ángeles precisamente pueden bailar en la cabeza de un alfiler.
Un replicador activo es cualquier replicador cuya naturaleza tiene cierta influencia sobre su probabilidad de ser copiado. Por ejemplo, una molécula de ADN, a través de la síntesis de proteínas, ejerce efectos fenotípicos que influyen en si es copiada: de esto trata la selección natural. Un replicador pasivo es un replicador cuya naturaleza no tiene ninguna influencia sobre su probabilidad de ser copiado. A primera vista, una hoja de papel fotocopiada parece ser un ejemplo, pero algunos podrían argumentar que su naturaleza sí que influye en si es copiada, por lo que es activa: los seres humanos son más propensos a fotocopiar unas hojas de papel que otras, debido a lo que está escrito en ellas, y estos ejemplares son, a su vez, relativamente propensos a ser copiados de nuevo. Una sección de ADN que nunca se transcribe podría ser un auténtico ejemplo de un replicador pasivo (pero véase el capítulo 9 sobre el ADN egoísta).
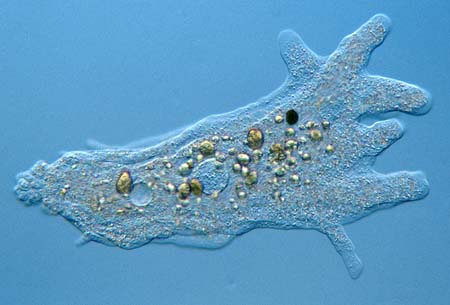 |
| Amoeba proteus. Fuente. |
Un replicador de línea germinal (que puede ser activo o pasivo) es un replicador que es el ancestro potencial de una línea indefinidamente larga de replicadores descendientes. Un gen en un gameto es un replicador de la línea germinal. Así es un gen en una de las células de la línea germinal de un cuerpo, un ancestro mitótico directo de un gameto. Así es cualquier gen en Amoeba proteus. Así es una molécula de ARN en uno de los tubos de ensayo de Orgel (1979). Un replicador sin salida (que también puede ser activo o pasivo) es un replicador que puede ser copiado un número finito de veces, dando lugar a una cadena corta de descendientes, pero que definitivamente no es el ancestro potencial de una línea indefinidamente larga de descendientes. La mayor parte de las moléculas de ADN en nuestro cuerpo son replicadores sin salida. Pueden ser los ancestros de algunas decenas de generaciones de replicación mitótica, pero definitivamente no serán antepasados a largo plazo.
 |
| Hojas cortadas y plantadas de Streptocarpus. Fuente. |
Una molécula de ADN en la línea germinal de un individuo que muera joven, o que de otra manera falle en reproducirse, no debería ser llamada un replicador sin salida. Tales líneas germinales son, como resultan ser, terminales. Fallan en lo que metafóricamente puede llamarse su aspiración a la inmortalidad. Un fallo diferencial de este tipo es lo que entendemos por selección natural. Pero tanto si tiene éxito en la práctica o no, cualquier replicador de la línea germinal es potencialmente inmortal. Aspira a la inmortalidad, pero en la práctica está en peligro de fracaso. Todas las moléculas de ADN de las obreras de insectos sociales totalmente estériles son, sin embargo, verdaderos replicadores sin salida. Ni siquiera aspiran a replicarse indefinidamente. Las obreras carecen de una línea germinal, no por una cuestión de mala suerte, sino por una cuestión de diseño. En este sentido, se parecen a las células hepáticas humanas más que a las espermatogonias de un ser humano que sea célibe. Puede haber {84} casos intermedios extraños, por ejemplo, la obrera 'estéril' que se convierte en facultativamente fértil si su madre muere, y la hoja de Streptocarpus que no se espera que propague una nueva planta, pero que puede hacerlo si se planta como un esqueje. Pero esto se está poniendo teológico: no nos preocupemos de cuántos ángeles precisamente pueden bailar en la cabeza de un alfiler.
Suscribirse a:
Entradas (Atom)