De esta manera de observar los organismos se
deduce que el producto final, el
'objetivo' de la fase del ciclo de crecimiento, es la reproducción. Todas las
divisiones celulares mitóticas que construyen un elefante están dirigidas al fin último de propagar gametos viables que consigan la
perpetuación de la línea germinal. Ahora, reteniendo esa idea, mirad a los áfidos. Durante
el verano, las hembras asexuales pasan por generaciones repetidas de
reproducción asexual que culminan en una sola generación sexual, que reinicia el ciclo. Es
evidente que, por analogía con el elefante, es fácil seguir a Janzen cuando ve que las generaciones asexuales del verano están todas dirigidas hacia el
definitivo final de la reproducción sexual en otoño. La reproducción asexual, de acuerdo con este punto de vista, no es realmente una reproducción en absoluto. Es crecimiento, al igual que el crecimiento del cuerpo de un elefante individual. Para Janzen, todos los clones de áfidos hembra son un solo individuo evolutivo, porque es el producto de una sola fusión sexual. Es un individuo inusual, ya que ocurre que está dividido en un número de unidades físicamente separadas, pero ¿y qué? Cada
una de esas unidades físicas contiene su propio fragmento de la línea
germinal, pero también lo hace el ovario izquierdo y el ovario derecho
de una hembra de elefante. Los fragmentos de la línea germinal en el caso de los áfidos están
separadas por el aire, mientras que los dos ovarios de un elefante están separados por las tripas, pero, de nuevo, ¿y qué?
Por persuasiva que sea esta línea de argumentación, ya he dicho que creo que carece de un punto importante. Es correcto considerar la mayoría de divisiones celulares mitóticas como 'crecimiento', 'dirigidas' a la meta final de la reproducción, y es justo
considerar al organismo individual como el producto de un evento
reproductivo, pero Janzen se equivoca en equiparar la distinción reproducción/crecimiento con la distinción sexual/asexual. Sin duda, aquí hay una importante distinción oculta, pero no es
la distinción entre el sexo y el no-sexo, ni la distinción entre
meiosis y mitosis.
La
distinción que quiero destacar es entre la división de la línea
germinal de células (reproducción) y la somática o división celular 'sin
salida' (crecimiento). Una
división de las células de la línea germinal es aquella en que los genes que se duplican tienen la oportunidad de ser los antepasados de una
línea indefinidamente larga de descendientes, donde los genes son,
de hecho, verdaderos replicadores de la línea germinal en el sentido del
Capítulo 5. Una división celular de la línea germinal puede ser una mitosis o una meiosis. Si
nos limitamos a mirar una división celular bajo el microscopio, puede
que no haya forma de saber si se trata de una división de la línea
germinal o no. Tanto las divisiones celulares de la línea germinal como las somáticas pueden ser mitosis de apariencia idéntica.
viernes, 26 de octubre de 2018

viernes, 19 de octubre de 2018
Capítulo 14.- Redescubriendo el Organismo (254)
Janzen
(1977) se enfrenta a la misma dificultad, lo que sugiere que un clon de
diente de león debe ser considerado como un 'individuo evolutivo'
(el genet de Harper), equivalente a un solo árbol, aunque se extiende a
lo largo del suelo en vez de elevarse en el aire sobre un tronco, y aunque esté dividido en 'plantas' físicas separadas (los ramets de Harper). De
acuerdo con este punto de vista, puede haber tan sólo cuatro dientes de
león individuales, que compiten entre sí por el territorio de toda
América del Norte. Janzen ve un clon de áfidos de la misma manera. Su artículo no tiene ninguna cita bibliográfica , pero su perspectiva no es nueva. Se
remonta como mínimo a 1854, cuando T.H. Huxley 'trató cada ciclo de vida como un individuo, con todos los productos de evento sexual a
evento sexual siendo una sola unidad. Incluso trató un linaje asexual de pulgones como individuo' (Ghiselin 1981). Esta forma de pensar tiene su mérito, pero voy a demostrar que deja fuera algo importante.
Una forma de volver a expresar el argumento de Huxley/Janzen es la siguiente. La línea germinal de un organismo típico, por ejemplo un ser humano, pasa a través de una secuencia de tal vez un par de docenas de divisiones mitóticas entre cada meiosis. Empleando la vía 'hacia atrás' del Capítulo 5 de observar la 'experiencia pasada de un gen', un determinado gen en un ser humano vivo tiene una historia de divisiones celulares de la siguiente manera: meiosis mitosis mitosis ... mitosis meiosis. En cada sucesivo cuerpo, en paralelo con la división mitótica de la línea germinal, otras divisiones mitóticas han nutrido a la línea germinal con un gran clon de células 'auxiliares', agrupadas juntas en el cuerpo en el que se encuentra la línea germinal. En cada generación, la línea germinal se canaliza en un 'cuello de botella' de una sola célula (un gameto seguido de un cigoto), luego se distribuye en un cuerpo pluricelular, luego se canaliza por un nuevo cuello de botella, etc. (Bonner 1974).
El cuerpo pluricelular es una máquina para la producción de propágulos unicelulares. Los cuerpos grandes, como los elefantes, se contemplan mejor como maquinaria pesada y engranajes, un despilfarro temporal de recursos, invertidos con el fin de mejorar la producción final de propágulos (Southwood 1976). En cierto sentido, a la línea germinal 'le gustaría' reducir la inversión de capital en maquinaria pesada, reducir el número de divisiones celulares en la parte de crecimiento del ciclo, a fin de reducir el intervalo entre la recurrencia de la parte reproductiva del ciclo. Pero este intervalo de recurrencia tiene una longitud óptima que es diferente para diferentes formas de vida. Los genes que provocaran que los elefantes se reprodujeran cuando fueran demasiado jovenes y pequeños se propagarían menos eficientemente que los alelos que tienden a producir un intervalo de recurrencia óptima. El intervalo de recurrencia óptima para los genes que se encuentran en los acervos genéticos del elefante es mucho más largo que el intervalo {255} de recurrencia óptima para los genes en los acervos genéticos del ratón. En el caso del elefante, se requiere establecer una mayor inversión de capital antes de buscar rendimientos a la inversión. Un protozoo prescinde de gran parte del ciclo completo en la fase de crecimiento, y sus divisiones celulares son todas divisiones celulares 'reproductivas'.
viernes, 12 de octubre de 2018
Capítulo 14.- Redescubriendo el Organismo (253)
Pero ¿por qué tiene que haber un conjunto completo de genes en cada célula de un organismo en desarrollo? Seguramente es fácil imaginar una forma de vida en la que las partes del
genoma estén disociadas durante la diferenciación, de forma que un
tipo determinado de tejido, pongamos tejido hepático o tejido renal, tenga sólo
los genes que necesita. Sólo las células de la línea germinal, al parecer, realmente necesitan preservar todo el genoma. Puede que la razón sea simplemente que no hay manera fácil, físicamente, de disociar partes del genoma. No
es, después de todo, como si los genes necesarios en cualquier región
diferenciada particular del cuerpo en desarrollo estuvieran todos segregados en un
cromosoma. Ahora podríamos preguntarnos, supongo, por qué esto tenía que ser así. Dado
que es así, una plena división de todo el genoma en cada división
celular puede ser simplemente la manera más fácil y económica de hacer
las cosas. Sin
embargo, a la luz de mi parábola (Capítulo 9) del marciano ingenuo y de la desconfianza necesaria, el lector puede tener la
tentación de especular más. ¿Pudiera
ser que la duplicación total, no parcial, del genoma en la mitosis sea una adaptación de algunos genes para mantenerse en condiciones de
supervisar y frustrar a los posibles delincuentes entre sus colegas? Personalmente
lo dudo, no porque la idea sea intrínsecamente inverosímil, sino porque
es difícil entender cómo un gen en el hígado, por ejemplo, pudiera salir beneficiado por ser un delincuente que manipulara el hígado de forma que fuera en detrimento de los genes en el riñón o en el bazo. Siguiendo la lógica del capítulo sobre los parásitos, los intereses de
los 'genes hepáticos' y de los 'genes renales' se solaparían, ya que comparten
la misma línea germinal y la misma ruta gamética para salir del cuerpo en el que están.
No he dado una definición rigurosa de organismo. De hecho, la utilidad del concepto de organismo es discutible, precisamente porque es tan difícil de definir de manera satisfactoria. Desde el punto de vista inmunológico o genético, un par de gemelos monocigóticos tendría que contar como un solo organismo, pero está claro que no se podría calificar así desde el punto de vista del fisiólogo, el etólogo, o desde el criterio de indivisibilidad de Huxley. ¿Cuál es 'el individuo' en un sifonóforo colonial o en briozoos?
Los botánicos tienen buenas razones para ser menos afectuosos con el concepto de 'organismo individual' que los zoólogos: 'La mosca de la fruta individual, el escarabajo de la harina, el conejo, el gusano o un elefante es una población a nivel celular, pero en ningún otro nivel superior. La inanición no cambia el número de patas, de corazones o hígados de un animal, pero el efecto del estrés en una planta es alterar tanto la tasa de formación de hojas nuevas como la tasa de muerte de las viejas: una planta puede reaccionar al estrés variando el número de sus partes' (Harper 1977, pp. 20-21). Para Harper, como biólogo de poblaciones de plantas, la hoja puede ser un 'individuo' más evidente que 'la planta', ya que la planta es una desordenada y vaga entidad para la que la reproducción puede ser difícil de distinguir de lo que un zoólogo alegremente llamaría 'crecimiento'. Harper se siente obligado a acuñar dos nuevos términos para los diferentes tipos de 'individuo' en botánica. 'El {254} "ramet" es la unidad de crecimiento clonal, el módulo que a menudo puede seguir una existencia independiente si es separado de la planta madre.' A veces, como en las fresas, el ramet es la unidad que ordinariamente llamamos una 'planta'. En otros casos, como el trébol blanco, el ramet puede ser simplemente la hoja. El "genet", por el contrario, es la unidad que brota de un cigoto unicelular, el 'individuo' en el sentido que le da un zoólogo cuyos animales se reproducen sexualmente.
No he dado una definición rigurosa de organismo. De hecho, la utilidad del concepto de organismo es discutible, precisamente porque es tan difícil de definir de manera satisfactoria. Desde el punto de vista inmunológico o genético, un par de gemelos monocigóticos tendría que contar como un solo organismo, pero está claro que no se podría calificar así desde el punto de vista del fisiólogo, el etólogo, o desde el criterio de indivisibilidad de Huxley. ¿Cuál es 'el individuo' en un sifonóforo colonial o en briozoos?
 |
| Sifonóforo colonial. Fuente. |
 |
| Briozoo. Fuente. |
Los botánicos tienen buenas razones para ser menos afectuosos con el concepto de 'organismo individual' que los zoólogos: 'La mosca de la fruta individual, el escarabajo de la harina, el conejo, el gusano o un elefante es una población a nivel celular, pero en ningún otro nivel superior. La inanición no cambia el número de patas, de corazones o hígados de un animal, pero el efecto del estrés en una planta es alterar tanto la tasa de formación de hojas nuevas como la tasa de muerte de las viejas: una planta puede reaccionar al estrés variando el número de sus partes' (Harper 1977, pp. 20-21). Para Harper, como biólogo de poblaciones de plantas, la hoja puede ser un 'individuo' más evidente que 'la planta', ya que la planta es una desordenada y vaga entidad para la que la reproducción puede ser difícil de distinguir de lo que un zoólogo alegremente llamaría 'crecimiento'. Harper se siente obligado a acuñar dos nuevos términos para los diferentes tipos de 'individuo' en botánica. 'El {254} "ramet" es la unidad de crecimiento clonal, el módulo que a menudo puede seguir una existencia independiente si es separado de la planta madre.' A veces, como en las fresas, el ramet es la unidad que ordinariamente llamamos una 'planta'. En otros casos, como el trébol blanco, el ramet puede ser simplemente la hoja. El "genet", por el contrario, es la unidad que brota de un cigoto unicelular, el 'individuo' en el sentido que le da un zoólogo cuyos animales se reproducen sexualmente.
viernes, 5 de octubre de 2018
Capítulo 14.- Redescubriendo el Organismo (252)
Para preguntarnos por qué el mundo es como es, tenemos que imaginar cómo podría haber sido. Nos
inventamos mundos posibles en los que la vida podría haberse
organizado de manera diferente, y nos preguntamos qué hubiera pasado si
esto hubiera ocurrido. Entonces ¿Qué alternativas instructivas al modo en cómo es la vida podemos imaginar? En
primer lugar, para ver por qué las moléculas replicantes se agrupan en células, nos imaginamos un mundo en el que hay moléculas
replicantes que flotan libremente en el mar. Hay
diferentes variedades de replicador, y están compitiendo entre sí por
el espacio y los recursos químicos necesarios para construir copias de
sí mismos, pero no se agrupan en cromosomas o núcleos. Cada
replicador solitario ejerce su poder fenotípico para hacer copias de sí
mismo, y la selección favorece a los que tienen el poder fenotípico más
eficaz. Es fácil creer que esta forma de vida no sería evolutivamente estable. Sería invadida por replicadores mutantes que 'conspirarían'. Ciertos
replicadores tendrían efectos químicos que complementarían los de otros
replicadores, complementándolos en el sentido de que cuando los dos
efectos químicos se unieran, se facilitaría la replicación de ambos (el Modelo 2
en el capítulo anterior). Ya
he usado el ejemplo de los genes que codifican enzimas que catalizan
las etapas sucesivas de una reacción bioquímica en cadena. Puede aplicarse el
mismo principio a grupos más grandes de moléculas replicantes mutuamente complementarias. De hecho, la bioquímica terrestre
sugiere que la unidad mínima de replicación, excepto posiblemente en el
entorno rico en alimentos de un parásito total, es de unos cincuenta
cistrones (Margulis 1981). No
hay ninguna diferencia para el argumento si los nuevos genes surgen
por duplicación de los viejos y permanecen juntos, o si previamente
genes independientes iban positivamente juntos. Aún podemos hablar de la estabilidad evolutiva del estado de estar 'confabulado'.
Entonces, es fácil de entender la confabulación de genes juntos en células, pero ¿por qué las células se confabularon juntas en clones multicelulares? En este caso, podría pensarse que no tenemos que inventar experimentos mentales, porque los organismos unicelulares, o acelulares, abundan en nuestro mundo. Sin embargo, son todos pequeños, y puede ser útil imaginar un posible mundo en el que existan grandes y complejos organismos unicelulares o mononucleados. ¿Podría haber una forma de vida en la que un único conjunto de genes, entronizado en un solo núcleo central, dirigiera la bioquímica de un cuerpo macroscópico con órganos complejos, ya fuera una sola 'célula' gigante, o un cuerpo multicelular en el que todas menos una de las células carecieran de sus propias copias privadas del genoma? Creo que tal forma de vida tan sólo podría existir si su embriología siguiera principios muy diferentes de aquellos con los que estamos familiarizados. En las embriologías que conocemos, sólo una minoría de genes 'se activan' en cualquier tipo de diferenciación del tejido en un momento dado (Gurdon 1974). Es cierto que es un argumento débil en esta etapa, pero si hubiera sólo un conjunto de genes en todo el cuerpo, no es fácil ver cómo los productos apropiados de los genes podrían haberse {253} transmitido a las distintas partes del cuerpo diferenciado en los momentos apropiados.
Entonces, es fácil de entender la confabulación de genes juntos en células, pero ¿por qué las células se confabularon juntas en clones multicelulares? En este caso, podría pensarse que no tenemos que inventar experimentos mentales, porque los organismos unicelulares, o acelulares, abundan en nuestro mundo. Sin embargo, son todos pequeños, y puede ser útil imaginar un posible mundo en el que existan grandes y complejos organismos unicelulares o mononucleados. ¿Podría haber una forma de vida en la que un único conjunto de genes, entronizado en un solo núcleo central, dirigiera la bioquímica de un cuerpo macroscópico con órganos complejos, ya fuera una sola 'célula' gigante, o un cuerpo multicelular en el que todas menos una de las células carecieran de sus propias copias privadas del genoma? Creo que tal forma de vida tan sólo podría existir si su embriología siguiera principios muy diferentes de aquellos con los que estamos familiarizados. En las embriologías que conocemos, sólo una minoría de genes 'se activan' en cualquier tipo de diferenciación del tejido en un momento dado (Gurdon 1974). Es cierto que es un argumento débil en esta etapa, pero si hubiera sólo un conjunto de genes en todo el cuerpo, no es fácil ver cómo los productos apropiados de los genes podrían haberse {253} transmitido a las distintas partes del cuerpo diferenciado en los momentos apropiados.
viernes, 28 de septiembre de 2018
Capítulo 14.- Redescubriendo el Organismo (251)
Agradezco
al Dr. J.P. Hailman por no tener en cuenta mi reacción sarcástica con un
colega por un artículo que fue una breve prueba de este libro
(Dawkins 1978a): 'Richard Dawkins ha redescubierto el organismo'. La ironía no me pasó desapercibida, pero tiene su miga. Estamos
de acuerdo en que hay algo especial en el organismo individual como un
nivel en la jerarquía de la vida, pero no es algo obvio, para ser
aceptado sin rechistar. Mi esperanza es que este libro haya revelado que hay una segunda cara del cubo de Necker. Pero los cubos de Necker tienen el hábito de voltearse de nuevo a su posición original, y luego volver a alternar. Sea
lo que sea lo especial del organismo individual como una
unidad de la vida, deberíamos como mínimo verlo con más claridad, por haber
visto el otro lado del cubo de Necker, por haber entrenado nuestros
ojos para ver a través de las paredes del cuerpo en el mundo de replicadores, y fuera y más allá de sus fenotipos extendidos.
Entonces, ¿qué es lo que tiene de especial el organismo individual? Habida cuenta de que la vida puede ser vista como un conjunto de replicadores con sus herramientas fenotípicas extendidas de supervivencia, ¿por qué en la práctica los replicadores han elegido agruparse entre sí por cientos de miles en células? ¿y por qué han influido en esas células para clonarse a sí mismos por millones de miles de millones en organismos?
La lógica de los sistemas complejos sugiere un tipo de respuesta. Simon (1962) ha escrito un estimulante ensayo sobre 'La arquitectura de la complejidad', que sugiere (usando una parábola de dos relojeros denominada Tempus y Hora, que se ha convertido en muy conocida), una razón funcional general del por qué una organización compleja de cualquier tipo, biológica o artificial, tiende a organizarse en jerarquías anidadas de subunidades repetidas. He desarrollado su argumento en el contexto etológico, concluyendo que la evolución de los estadísticamente 'improbables conjuntos avanza más rápidamente si hay una sucesión de subconjuntos estables intermedios. Dado que el argumento se puede aplicar a cada subconjunto, se deduce que los sistemas altamente complejos que existen en el mundo es probable que tengan una arquitectura jerárquica' (Dawkins 1976b). En el presente contexto, la jerarquía se compone de genes dentro de células, y de células dentro de organismos. Margulis (1981) expone convincentes y fascinantes argumentos de la vieja idea de que la jerarquía contiene otro nivel intermedio: las 'células' eucariotas son en sí mismas, en cierto sentido, grupos multicelulares, uniones simbióticas de entidades tales como mitocondrias, plástidos y cilios, que son homólogas a, y descendientes de, las células procariotas. No voy a continuar con el asunto aquí. La explicación de Simon es muy general, y necesitamos una respuesta más concreta a la pregunta de por qué los replicadores {252} decidieron organizar sus fenotipos en unidades funcionales, sobre todo en dos niveles, el de la célula y el del organismo multicelular.
viernes, 21 de septiembre de 2018
Capítulo 14.- Redescubriendo el Organismo (250)
14.- Redescubriendo el Organismo
Después de haber dedicado la mayor parte de este libro a restar importancia al organismo individual, y a construir una imagen alternativa de un torbellino de replicadores egoístas, luchando por su propia supervivencia a costa de sus alelos, atravesando sin obstáculos las paredes del cuerpo individual, como si esas paredes fueran transparentes, interactuando con el mundo y con los otros sin tener en cuenta los límites del organismo, ahora dudamos. Realmente hay algo bastante impresionante respecto a los organismos individuales. Si realmente pudiéramos llevar gafas que hicieran los cuerpos transparentes y mostraran sólo el ADN, la distribución de ADN que íbamos a ver en el mundo sería abrumadoramente no aleatoria. Si los núcleos celulares brillaran como estrellas y todo lo demás fuera invisible, los organismos multicelulares aparecerían como galaxias compactas con un enorme espacio entre ellas. Un millón de millones de puntitos brillantes que se mueven al unísono entre sí y fuera de sintonía con todos los miembros de las otras galaxias.
Un organismo es una máquina físicamente diferenciada, generalmente aislada de las otras máquinas. Cuenta con una organización interna, a menudo de complejidad asombrosa, y muestra en tal alto grado la cualidad que Julian Huxley (1912) etiquetó 'individualidad', -literalmente, indivisibilidad- la cualidad de ser lo suficientemente heterogéneo en forma que se vuelve no funcional si se corta por la mitad. Genéticamente hablando, también, el organismo individual es por lo general una unidad claramente definible, cuyas células tienen los mismos genes que las otras células, pero diferentes genes que las células de otros organismos. Para un inmunólogo, el organismo individual tiene un tipo especial de 'singularidad' (Medawar 1957), por la que aceptará fácilmente injertos de otras partes de su propio cuerpo, pero no de otros cuerpos. Para el etólogo -y esto es realmente un aspecto de la indivisibilidad de Huxley- el organismo es una unidad de acción de comportamiento en un sentido mucho más fuerte que, pongamos, dos organismos, o un miembro de un organismo. Un organismo tiene un sistema nervioso central coordinado. Toma 'decisiones' (Dawkins y Dawkins 1973) como una unidad. Todos sus miembros conspiran juntos en armonía para lograr un fin a la vez. En aquellas ocasiones en que dos o más organismos tratan de coordinar sus esfuerzos, pongamos cuando una manada de leones {251} acecha cooperativamente la presa, las hazañas de coordinación entre los individuos son débiles en comparación con la orquestación compleja, de alta precisión espacial y temporal, de los cientos de músculos dentro de cada individuo. Incluso una estrella de mar, cuyos pies ambulacrales disfrutan de un grado de autonomía y se puede dividir el animal en dos si se le corta quirúrgicamente el anillo nervioso circum-oral, se ve como una sola entidad, y en la naturaleza se comporta como si tuviera un solo propósito.
viernes, 14 de septiembre de 2018
Capítulo 13.- Acción a Distancia (y 249)
Una
vez, cuando traté de persuadir de esto a un colega -es un firme
creyente en el poder de la selección darwiniana, y un buen investigador
de campo en ello- pensó que yo estaba haciendo un razonamiento anti-adaptación.
Me
advirtió que una y otra vez se había explicado algún capricho del
comportamiento animal o de morfología como sin función o
desadaptativo, sólo para descubrir que no lo habían entendido plenamente. Estaba en lo correcto. Pero el razonamiento que estoy haciendo es diferente. Cuando
digo aquí que un patrón de comportamiento es desadaptativo, solamente
quiero decir que es desadaptativo para el animal que lo realiza. Lo
que sugiero es que el individuo que realiza la conducta no es la entidad para cuyo beneficio el comportamiento es una adaptación. Las adaptaciones benefician a los replicadores genéticos responsables
de las mismas, y sólo incidentalmente a los organismos individuales
involucrados.
Este podría haber sido el final del libro. Hemos ampliado el fenotipo tan lejos como puede llegar. Los últimos tres capítulos constituyen de alguna forma una culminación, y podríamos habernos contentado con esto como consumación. Pero prefiero terminar con optimismo, para iniciar el despertar de una nueva curiosidad tentativa. Confesé desde el principio que sería un abogado, y una manera fácil para cualquier defensor de preparar el terreno de su caso es atacar a la alternativa. Por tanto, antes de defender la doctrina del fenotipo extendido del replicador activo de una línea germinal, he tratado de socavar la confianza del lector en el organismo individual como unidad de beneficio adaptativo. Pero, ahora que hemos discutido el mismo fenotipo extendido, es el momento de reabrir la cuestión de la existencia del organismo y su evidente importancia en la jerarquía de la vida, y ver si lo vemos más claro a la luz del fenotipo extendido. Dado que la vida no tiene porqué ser envasada en organismos discretos, y admitiendo que los organismos no siempre son totalmente discretos, ¿por qué, sin embargo, hizo que los replicadores de la línea germinal activa optaran tan conspicuamente por el camino del organismo para hacer las cosas?
Este podría haber sido el final del libro. Hemos ampliado el fenotipo tan lejos como puede llegar. Los últimos tres capítulos constituyen de alguna forma una culminación, y podríamos habernos contentado con esto como consumación. Pero prefiero terminar con optimismo, para iniciar el despertar de una nueva curiosidad tentativa. Confesé desde el principio que sería un abogado, y una manera fácil para cualquier defensor de preparar el terreno de su caso es atacar a la alternativa. Por tanto, antes de defender la doctrina del fenotipo extendido del replicador activo de una línea germinal, he tratado de socavar la confianza del lector en el organismo individual como unidad de beneficio adaptativo. Pero, ahora que hemos discutido el mismo fenotipo extendido, es el momento de reabrir la cuestión de la existencia del organismo y su evidente importancia en la jerarquía de la vida, y ver si lo vemos más claro a la luz del fenotipo extendido. Dado que la vida no tiene porqué ser envasada en organismos discretos, y admitiendo que los organismos no siempre son totalmente discretos, ¿por qué, sin embargo, hizo que los replicadores de la línea germinal activa optaran tan conspicuamente por el camino del organismo para hacer las cosas?
viernes, 7 de septiembre de 2018
Capítulo 13.- Acción a Distancia (248)
Me resulta difícil imaginar qué matemáticas serían necesarias para la {248} comprensión de los detalles. Tengo
una visión borrosa de los caracteres fenotípicos en un espacio evolutivo siendo estirados por replicadores, bajo la selección, en diferentes direcciones. En la esencia de mi enfoque está que los replicadores que estiran de cualquier
característica fenotípica dada incluirán algunos desde fuera del
cuerpo, así como los que hay en su interior. Algunos, obviamente, serán estirados más fácilmente que otros, por lo que las flechas de fuerza tendrán diversa magnitud y dirección. Presumiblemente, la teoría de las carreras armamentistas -el efecto
enemigo raro, el principio de vida/cena, etc.- tendrá un papel
destacado a la hora de la asignación de estas magnitudes. Probablemente la proximidad
física de Sheer jugará un papel: parece probable que los genes,
en igualdad de condiciones, ejercen más poder sobre los caracteres
fenotípicos cercanos que sobre los lejanos. Como
un caso especialmente importante de esto, las células son en gran medida propensas a ser
influenciadas cuantitativamente por más genes dentro de
ellas que por genes dentro de otras células. Lo mismo ocurrirá para los cuerpos. Pero
estos serán los efectos cuantitativos, para ser pesados en la balanza
con otras consideraciones de la teoría de la carrera de armamentos. A
veces, se dice que debido al efecto enemigo raro, los genes en otros
organismos pueden ejercer más poder que los propios genes del cuerpo,
sobre aspectos particulares de su fenotipo. Mi presentimiento es que casi todos los caracteres fenotípicos se revelarán como portadores de las marcas de concertación entre las fuerzas internas y externas del replicador.
La idea de conflicto y acuerdo entre muchas presiones de selección llevadas por un carácter fenotípico determinado es, por supuesto, familiar en la biología ordinaria. A menudo hablamos de, por ejemplo, el tamaño de la cola de un ave como un compromiso entre las necesidades de la aerodinámica y las necesidades del atractivo sexual. No sé qué clase de matemáticas se consideran adecuadas para describir este tipo de conflicto y acuerdo dentro del cuerpo, pero sean las que sean, deben generalizarse para hacer frente a los problemas análogos de la acción genética a distancia y de los fenotipos extendidos.
Pero no tengo alas para volar en espacios matemáticos. Debe haber un mensaje verbal para aquellos que estudian los animales en el campo. ¿Qué diferencia habrá entre la doctrina del fenotipo extendido y lo que realmente vemos en los animales? La mayoría de los biólogos de campo serios ahora suscriben el teorema, en gran parte debido a Hamilton, que se espera que los animales se comporten para maximizar las posibilidades de supervivencia de todos los genes dentro de ellos. He modificado esto con un nuevo teorema central del fenotipo extendido: el comportamiento de un animal tiende a maximizar la supervivencia de los genes 'para' esa conducta, estén o no esos genes en el cuerpo del animal en particular que realiza la conducta. Los dos teoremas equivaldrían a lo mismo si los fenotipos animales siempre estuvieran bajo el control sin adulterar de sus propios genotipos, y sin la influencia de los genes de otros organismos. Antes de una teoría matemática para manejar las interacciones cuantitativas entre presiones contradictorias, tal vez la conclusión cualitativa más simple es que el comportamiento que estamos viendo puede ser, al menos en parte, una adaptación para la {249} preservación de genes de alguna otra planta o animal. Por lo tanto, puede ser una verdadera mala adaptación para el organismo que realiza tal comportamiento.
viernes, 31 de agosto de 2018
Capítulo 13.- Acción a Distancia (247)
 |
| Linum usitatissimum con Melampsora lini. Fuente. |
Y también más allá de los reinos. Tenga en cuenta la interacción entre el lino (Linum usitatissimum) [Nota del Traductor: Dawkins utiliza el nombre Linum usitissimum, por motivos que desconozco, cuando el nombre mucho más extesamente aceptado es Linum usitatissimum] y el hongo del moho Melampsora lini, aunque esta es una interacción antagonista en vez de cooperativa. 'Esencialmente hay un emparejamiento de uno a uno en el que un alelo específico en el lino confiere resistencia a un alelo específico en el hongo. Este sistema "gen-por-gen" ya se ha encontrado en muchas otras especies de plantas... Los modelos de interacciones gen-por-gen no se formulan en términos de parámetros ecológicos, debido a la naturaleza específica de los sistemas genéticos. Es un caso en el que las interacciones genéticas entre las especies pueden entenderse sin referencia a los fenotipos. Un modelo de un sistema gen-por-gen tendría necesariamente dependencia de la frecuencia entre-especies...' (Slatkin y Maynard Smith 1979, pp. 255-256).
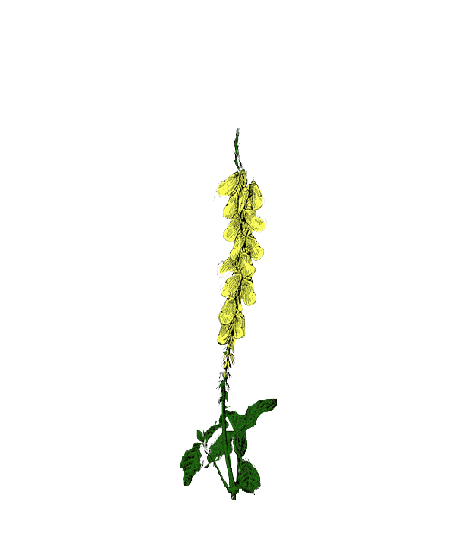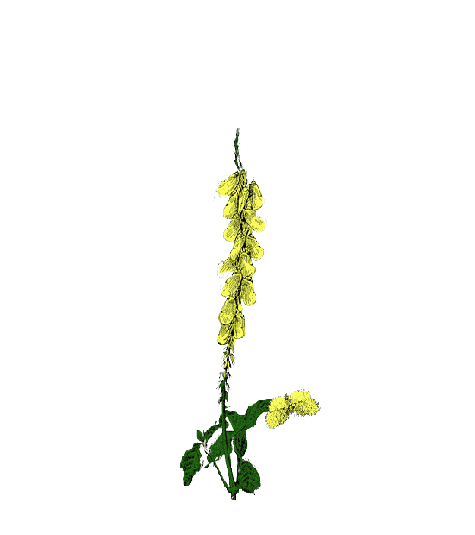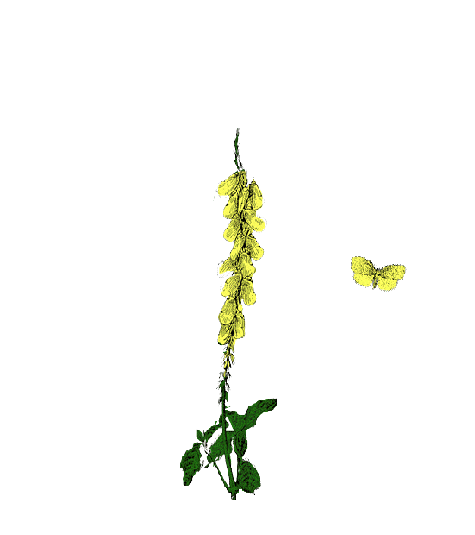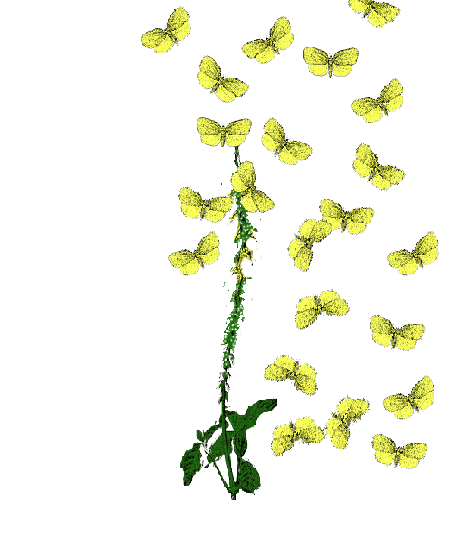
En este capítulo, como en otros, he utilizado experimentos mentales hipotéticos como ayuda para una explicación clara. En caso de que se encuentren demasiado exagerados, permítanme referirme de nuevo a Wickler para un ejemplo de una cigarra real que hace algo al menos tan descabellado como cualquier cosa que haya imaginado. Ityraea nigrocincta, como I. gregorii, practica el mimetismo cooperativo como inflorescencias de altramuces, pero, 'además, posee una peculiaridad, y es que los dos sexos tienen dos formas, una forma verde y una forma amarilla. Estas dos formas pueden agazaparse juntas, y las formas verdes tienden a sentarse en la parte superior del tronco, especialmente en los tallos verticales, con las formas amarillas debajo. El resultado es una "inflorescencia" extremadamente convincente, porque las verdaderas flores de las "inflorescencias" a menudo se abren progresivamente desde la base hasta el ápice, de manera que los brotes verdes aún están presentes en la punta cuando la base está cubierta de flores abiertas' (Wickler 1968).
 |
| Representación de insectos mimetizando una inflorescencia. Fuente. |
Estos tres capítulos han ampliado el concepto de la expresión fenotípica de los genes por fáciles etapas. Comenzamos con el reconocimiento de que incluso dentro de un cuerpo hay muchos grados de distancia del control del gen sobre los fenotipos. Para un gen nuclear, presumiblemente es más simple controlar la forma de la célula en la que se encuentra que controlar la forma de alguna otra célula, o de todo el cuerpo en el que la célula se asienta. Sin embargo, convencionalmente agrupamos los tres juntos y les llamamos a todo el control genético del fenotipo. Mi tesis ha sido que el paso conceptual más leve fuera del cuerpo inmediato es un paso comparativamente menor. No obstante, es poco familiar, y he tratado de desarrollar la idea en etapas, desde objetos inanimados hasta los parásitos internos que controlan el comportamiento de sus hospedadores. A partir de los parásitos internos nos mudamos vía cucos a la acción a distancia. En teoría, la acción genética a distancia podría incluir casi todas las interacciones entre individuos de la propia o de diferentes especies. El mundo viviente puede ser visto como una red de campos imbricados de poder replicador.
Suscribirse a:
Entradas (Atom)