viernes, 6 de noviembre de 2015

Capítulo 6.- Organismos, Grupos y Memes: ¿Replicantes o vehículos? (100)

Vamos, pues, a examinar si las especies se comportan como entidades lo suficientemente coherentes, multiplicándose y dando lugar a otras especies, para merecer ser llamadas replicadores. Nótese que esto no es lo mismo que la afirmación lógica de Ghiselin  (1974b) de que las especies son individuos (véase también Hull 1976). Los organismos también son individuos en el sentido de Ghiselin, y espero que yo ya haya establecido que los organismos no son replicadores. ¿Las especies, o, para ser más precisos, los acervos génicos reproductivamente aislados, responden realmente a la definición de replicadores? 


Lingula actual. Fuente.

Lingula
Lingula del silúrico. Fuente.


Es importante recordar que la mera inmortalidad no es una condición suficiente. Un linaje, tal como una secuencia de los padres y descendencia del largo tiempo inmutable género de braquiópodos Lingula, es interminable en el mismo sentido, y en la misma medida, que un linaje de genes. De hecho, para este ejemplo, tal vez no necesitáramos haber elegido un fósil viviente como Lingula. Incluso un linaje que evolucione rápidamente puede, en cierto sentido, ser tratado como una entidad que sea tanto extinta como existente en cualquier momento del tiempo geológico. Ahora bien, ciertos tipos de linaje pueden tener más probabilidades de extinguirse que otros, y quizás podamos ser capaces de discernir leyes estadísticas de la extinción. Por ejemplo, los linajes cuyas hembras se reproducen asexualmente pueden tener sistemáticamente más o menos probabilidades de extinguirse que los linajes cuyas hembras se adhieren a las relaciones sexuales (Williams 1975, Smith 1978a). Se ha sugerido que los linajes de amonites y bivalvos con una alta probabilidad de evolucionar a un tamaño más grande (es decir, con una alta probabilidad de obedecer la  Regla de Cope) tienen más probabilidades de extinguirse que los linajes que evolucionan más lentamente (Hallam 1975). Leigh (1977) hace algunos excelentes comentarios sobre la extinción diferencial de linajes, y su relación con los niveles inferiores de la selección: '... estas especies se ven favorecidas cuando la selección dentro de las poblaciones trabaja más de cerca por el bien de la especie'. La selección '... favorece a las especies que, por cualquier razón, han evolucionado sistemas genéticos en los que la ventaja selectiva de un gen coincide más próximamente con su contribución a la aptitud'. Hull (1980a, b) es particularmente claro sobre el estatus lógico del linaje, y sobre su distinción entre replicador e interactor (nombre que Hull da a lo que yo llamo el 'vehículo').

viernes, 30 de octubre de 2015

Capítulo 6.-Organismos, Grupos y Memes: ¿Replicantes o vehículos? (99)

Admitamos a pies juntillas que la temperatura en el nido que alberga un pájaro en desarrollo es importante tanto para su supervivencia inmediata como para la forma en que se desarrolle y, por tanto, para su éxito a largo plazo en la edad adulta. Los efectos inmediatos de los productos genéticos en los resortes bioquímicos del desarrollo pueden, de hecho, parecerse mucho a los efectos de los cambios de temperatura (Waddington 1957). Incluso podríamos imaginar los productos enzimáticos de genes como pequeños mecheros Bunsen, aplicados de manera selectiva en los nudos cruciales del ramificado árbol bioquímico de de la causalidad embrionaria, controlando el desarrollo a través de un control selectivo de las tasas de reacción bioquímica. Un embriólogo, correctamente, no ve ninguna diferencia fundamental entre los factores causales genéticos y los ambientales, y considera correctamente cada uno como necesario, pero no suficiente. Bateson estaba expresando el punto de vista del embriólogo, y ningún etólogo está mejor cualificado para hacerlo. Pero yo no estaba hablando de embriología. No me estaba refiriendo a las reclamaciones de los rivales de los determinantes del desarrollo. Estaba hablando de replicadores que sobreviven en el tiempo evolutivo, y Bateson ciertamente está de acuerdo en que ni un nido, ni la temperatura en su interior, ni el ave que lo construyó, son replicadores. Podemos ver rápidamente que no son replicadores experimentalmente, alterando uno de ellos. El cambio puede causar estragos en el animal, en su desarrollo y en sus posibilidades de supervivencia, pero el cambio no será transmitido a la siguiente generación. Ahora haga una mutilación similar (mutación) en un gen en la línea germinal: el cambio puede o no afectar el desarrollo de las aves y a su supervivencia, pero puede ser transmitido a la siguiente generación; puede ser replicado.

Como suele ser el caso, un aparente desacuerdo resulta ser debido a una incomprensión mutua. Yo pensaba que Bateson estaba negando el debido respeto al Replicador Inmortal. Bateson creía que yo estaba negando el respeto debido al Gran Nexo de factores causales complejos que interactuan en el desarrollo. De hecho, cada uno de nosotros estaba haciendo un legítimo hincapié en consideraciones que son importantes para los dos diferentes principales campos de la biología, el estudio del desarrollo y el estudio de la selección natural. Un organismo, por tanto, no es un replicador, ni siquiera (a pesar de Lewontin 1970a -véase Dawkins 1982) un tosco replicador con una mala fidelidad de copia. Por consiguiente, es mejor no hablar de adaptaciones por el bien del organismo. ¿Qué pasa con las unidades más grandes, grupos de organismos, especies, comunidades de especies, etc.? Algunas de estas agrupaciones más grandes están claramente sujetas a una forma de fragmentación interna que destruye el argumento de la fidelidad de copia. El agente de fragmentación en este caso no es el efecto de la recombinación de la meiosis, sino la inmigración y la emigración, la destrucción de la integridad de los grupos por el movimiento de los organismos dentro y fuera de ellos. Como he expresado antes, son como nubes en el cielo o tormentas de polvo en el desierto. Son agrupaciones o federaciones de carácter temporal. No son estables a través del {100} tiempo evolutivo. Las poblaciones pueden durar mucho tiempo, pero están en constante hemorragia con otras poblaciones, y por consiguiente pierden su identidad. También están sujetas a cambio evolutivo desde dentro. Una población no es una entidad lo suficientemente discreta como para ser una unidad de selección natural, no es lo bastante estable y unitaria como para ser 'seleccionada' con preferencia a otra población unitaria. Pero, al igual que el argumento de la 'fragmentación' se aplicaba sólo a un subconjunto de organismos, los sexuales, así éste también se aplica sólo a un subconjunto en el nivel de grupo. Se aplica a los grupos capaces de mestizaje, pero no se aplica a las especies reproductivamente aisladas.

viernes, 23 de octubre de 2015

Capítulo 6.-Organismos, Grupos y Memes: ¿Replicantes o vehículos? (98)

Lo siento si estoy a punto de desarrollar este argumento, pero me temo que me equivoqué en no ser claro al respecto antes de que se llegara a un desacuerdo innecesario {98} con Bateson, un desacuerdo que es valioso para resolver algunos problemas. Bateson (1978) planteó que los determinantes genéticos del desarrollo son necesarios pero no suficientes. Un gen puede 'programar' un trocito concreto de conducta, 'sin que sea la única cosa que lo hace'. Continúa:
    Dawkins acepta todo esto, pero luego revela su incertidumbre acerca de qué idioma se está utilizando para inmediatamente dar un estatus especial al gen otra vez como el programador. Consideremos un caso en el que la temperatura ambiental durante el desarrollo sea crucial para la expresión de un fenotipo particular. Si la temperatura cambia en unos pocos grados, la máquina de supervivencia es batida por otra. ¿No daría eso tanto estatus a un valor de temperatura necesario como a un gen necesario? También se requiere el valor de la temperatura para la expresión de un fenotipo particular. También es estable (dentro de unos límites) de una generación a la siguiente. Incluso puede ser transmitido de una generación a la siguiente, si la máquina de supervivencia hace un nido para sus crías. De hecho, utilizando un estilo de argumento teleológico propio de Dawkins, podría afirmarse que el pájaro es la forma que tiene el nido para hacer otro nido [Bateson 1978].

Respondí a Bateson, pero lo hice demasiado brevemente, recogiendo la última observación sobre nidos de pájaros y diciendo: 'Un nido no es un verdadero replicador porque una "mutación"
[no genética] que se produzca en la construcción de un nido, por ejemplo, la incorporación accidental de una aguja de pino en lugar de la hierba de costumbre, no se perpetúa en futuras "generaciones de nidos". Del mismo modo, las moléculas de proteína no son replicadores, ni lo es el ARN mensajero' (Dawkins 1978a). Bateson había tomado el eslogan de un pájaro como la vía de un gen para hacer otro gen, y la invirtió, sustituyendo 'nido' por 'gen'. Pero el paralelismo no es válido. Hay una flecha causal que va del gen al ave, pero ninguna en la dirección inversa. Un gen mutado puede perpetuarse mejor que su alelo no mutado. Un nido alterado no hará tal cosa a menos que, por supuesto, el cambio se deba a un gen mutado, en cuyo caso es el gen el que se perpetúa, no el nido. Un nido, como un pájaro, es la forma de un gen de hacer otro gen. Bateson está preocupado en que le parece que doy un 'estatus especial' a los determinantes genéticos de la conducta. Teme que el énfasis en el gen como la entidad en cuyo nombre se beneficia el trabajo de los organismos, en lugar de al revés, conduce a un excesivo énfasis en la importancia de la genética en lugar de los determinantes ambientales del desarrollo. La respuesta a esto es que, cuando hablamos de 'desarrollo', es oportuno destacar tanto los factores genéticos como los no genéticos. Pero cuando estamos hablando de unidades de selección hay que dar un énfasis diferente, un énfasis en las propiedades de los replicadores. {99} El estatus especial de los factores genéticos más que los no genéticos es merecido por una sola razón: los factores genéticos se replican a sí mismos, con defectos y todo, pero los factores no genéticos no.

viernes, 16 de octubre de 2015

Capítulo 6.-Organismos, Grupos y Memes: ¿Replicantes o vehículos? (97)

6.- Organismos, grupos y memes: ¿Replicantes o vehículos?


He dicho tanto sobre los efectos de la fragmentación de la meiosis como razón para no considerar los organismos que se reproducen sexualmente como replicadores, que es tentador verla como la única razón. Si esto fuera cierto, debería seguirse que los organismos que se reproducen asexualmente son verdaderos replicadores, y que cuando la reproducción es asexual podríamos hablar legítimamente de las adaptaciones como para el bien del organismo. Pero el efecto de fragmentación de la meiosis no es la única razón para negar que los organismos son verdaderos replicadores. Hay una razón más fundamental, y se aplica tanto a los organismos asexuales como a los de tipo sexual.

Considerar un organismo como un replicador, incluso un organismo asexual como un insecto palo hembra, equivale a una violación del  'dogma central' de la no herencia de los caracteres adquiridos. 


Insecto palo. Fuente: animal-wildlife

Un insecto palo se parece a un replicador en que podemos diseñar una secuencia formada por la hija, nieta, bisnieta, etc., en la que cada una aparece en la serie como una réplica de la anterior. Pero supongamos que aparece un defecto o imperfección en algún lugar de la cadena, por ejemplo un insecto palo que tiene la mala suerte de perder una pata. La tara puede durar toda su vida, pero no pasa al siguiente eslabón de la cadena. Los errores que afectan a los insectos palo, pero no a sus genes, no se perpetúan. Ahora diseñemos una serie paralela que consista en el genoma de la hija, el genoma de la nieta, el genoma de la bisnieta, etc. Si aparece una tara en algún lugar a lo largo de esta serie, se transmitirá a todos los siguientes eslabones de la cadena. También se puede reflejar en los cuerpos de todos los siguientes eslabones de la cadena, ya que en cada generación hay flechas causales dirigidas de los genes al cuerpo. Pero no hay ninguna flecha causal que vaya desde el cuerpo a los genes. Ninguna parte del fenotipo del insecto palo es un replicador. Tampoco lo es su cuerpo como un todo. Es erróneo decir que, 'así como los genes pueden transmitir su estructura en los linajes de genes, los organismos pueden transmitir su estructura en los linajes de organismos'.

viernes, 9 de octubre de 2015

Capítulo 5.- El Replicador Activo de la Línea Germinal (y 96)

Los replicadores de la línea germinal, entonces, son las unidades que realmente sobreviven o fallan en sobrevivir, siendo la diferencia la selección natural. Los replicadores activos tienen algún efecto en el mundo, lo que influye en sus posibilidades de sobrevivir. Se trata de los efectos en el mundo de los replicadores activos exitosos de la línea germinal que vemos como adaptaciones. Los fragmentos de ADN se califican como replicadores activos de la línea germinal. Donde hay reproducción sexual, estos fragmentos no deben definirse como demasiado grandes si se quiere conservar la propiedad de auto-duplicación. Y no deben definirse como demasiado pequeños si se han de considerar útilmente como activos.

Si hubiera sexo, pero no cruzamiento, cada cromosoma sería un replicador, y deberíamos hablar de adaptaciones como hechas para el bien de los cromosomas. Si no hay sexo, podemos, por la misma razón, tratar todo el genoma de un organismo asexual como un replicador. Pero el propio organismo no es un replicador. Esto es así por dos razones muy distintas que no deben confundirse entre sí. La primera razón se desprende de los argumentos desarrollados en este capítulo, y se aplica solamente cuando existe  reproducción sexual y  meiosis: la meiosis y la fusión sexual velan para que nuestros genomas no sean {96} replicadores, por lo que nosotros mismos no somos tampoco replicadores. La segunda razón se aplica a la reproducción asexual y sexual. Se explicará en el próximo capítulo, que va a discutir qué son los organismos, así como los grupos de organismos, dado que no son replicadores.

viernes, 2 de octubre de 2015

Capítulo 5.- El Replicador Activo de la Línea Germinal (95)

No estoy seguro de si el hecho tiene importancia, pero esta manera de mirar hacia atrás muestra que también los cromosomas X tienen una historia peculiar. Un gen en un {95} autosoma de un cuco hembra es tan probable que haya venido del padre como de la madre, en cuyo último caso experimenta la misma especie hospedadora en ejecución durante dos generaciones. Un gen en un cromosoma X de un cuco hembra está obligado a proceder del padre, por lo que no es especialmente probable que experimente la misma especie huésped dos generaciones en ejecución. Un 'test de comprobación' estadístico sobre la secuencia de las especies huésped experimentadas por un gen autosómico revelaría  por consiguiente un efecto ligero, mayor que el de un gen en un cromosoma X, y mucho menor que el de un gen en un cromosoma Y.


En cualquier animal, una porción invertida de cromosoma puede parecerse a un cromosoma Y en ser incapaz de cruzamiento. Por tanto, la 'experiencia' de cualquier parte del 'supergén invertido' incluye  repetidas veces las otras partes del supergén y sus consecuencias fenotípicas. Un gen de selección de hábitat en cualquier lugar en tal supergén, por ejemplo un gen que haga que los individuos elijan microclimas secos, proporcionará entonces una 'experiencia' de hábitat consistente para las sucesivas generaciones de todo el supergén. Así, un gen dado puede experimentar constantemente hábitats secos por el mismo tipo de razón por la que un gen en el cromosoma Y de un cuco experimenta constantemente los nidos de bisbita pratense. 
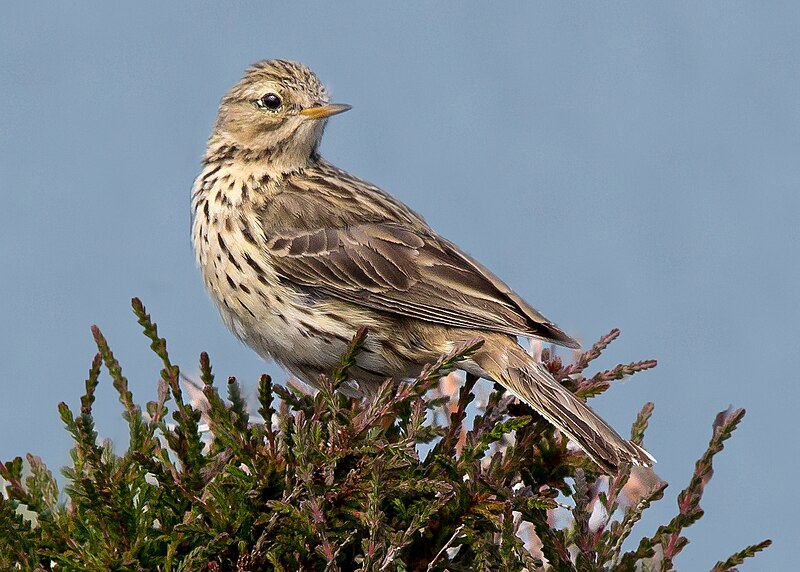
File:Meadow-pipit.jpg
Anthus pratensis (Bisbita pratense). Fuente: Wikipedia.

Esto proporcionará una consistente presión de selección orientada en ese locus, favoreciendo alelos que estén adaptados a un hábitat seco de la misma manera que los alelos para imitar los huevos de la bisbita pratense son favorecidos en los cromosomas Y de los cucos hembras del linaje de la bisbita pratense. Esta particular inversión supergénica tenderá a aparecer durante generaciones en hábitats secos, a pesar de que el resto del genoma pueda mezclarse aleatoriamente en todo el rango de hábitats disponibles para la especie. Por consiguiente, muchos loci diferentes en la parte invertida del cromosoma pueden llegar a adaptarse a un clima seco, y de nuevo puede darse algo parecido a una especiación intragenómica incipiente. Esta forma de mirar hacia atrás la 'experiencia' pasada de los replicadores genéticos me parece útil.

viernes, 25 de septiembre de 2015

Capítulo 5.- El Replicador Activo de la Línea Germinal (94)

Los genes que existen en la actualidad reflejan el conjunto de entornos que han {94} experimentado en el pasado. Esto incluye los entornos internos proveídos por los organismos que los genes han habitado y también los ambientes externos, desierto, bosque, costa, depredadores, parásitos, compañeros sociales, etc. Esto no es, por supuesto, porque los ambientes hayan imprimido sus cualidades en los genes -lo cual sería lamarckismo (véase el Capítulo 9)-, sino debido a que los genes que existen en la actualidad son un conjunto seleccionado, y las cualidades que los hicieron sobrevivir reflejan las cualidades de los entornos en los que sobrevivieron.

Dije que la experiencia de un gen consiste en el tiempo pasado en aproximadamente el 50 por ciento de cuerpos masculinos y el 50 por ciento de cuerpos femeninos, pero éste no es, desde luego, el caso de los genes en los cromosomas sexuales. En los mamíferos, asumiendo que no hay entrecruzamiento del
cromosoma Y, un gen en un cromosoma Y ha habitado sólo cuerpos masculinos, y un gen en un cromosoma X ha pasado dos tercios de su historia en cuerpos femeninos y un tercio en cuerpos masculinos. En las aves, los genes del cromosoma Y han habitado sólo los cuerpos femeninos, y en casos particulares, como los cucos, podemos decir algo más. Las hembras de Cuculus Canorus se dividen en 'linajes', cada uno parasitando una especie diferente de huésped (Lack 1968). Al parecer, cada hembra aprende las cualidades de sus propios padres adoptivos y de su nido, y vuelve cuando es adulta para parasitar la misma especie. Los machos no parecen discriminar en cuanto al linaje en su elección de pareja, y por tanto actúan como vehículos para el flujo de genes entre linajes. De los genes en un cuco hembra, por consiguiente, los de autosomas y el cromosoma X probablemente han tenido experiencia reciente en todos los linajes de la población, y han sido 'criados' por padres adoptivos que pertenecen a todas las especies parasitadas por la población de cucos. Pero el cromosoma Y está confinado durante largas secuencias de generaciones únicamente a un linaje y a una especie de huésped. De todos los genes que pasan por el nido de un petirrojo, un subconjunto -genes de petirrojo y genes de cuco con cromosoma Y (y genes de pulgas de petirrojo)- ha pasado por nidos de petirrojos desde muchas generaciones atrás. Otro subgrupo -genes autosómicos y  genes con cromosoma X de cuco- ha experimentado una mezcla de nidos. Por supuesto, el primer subconjunto comparte sólo una parte de su experiencia, una larga serie de nidos de petirrojo. En otros aspectos de su experiencia, los genes de cuco con cromosoma Y tendrán más en común con otros genes de cuco que con los genes de petirrojo. Pero en cuanto a lo que concierne a ciertas presiones de selección particulares que se encuentran en los nidos, los genes de cuco con cromosoma Y tienen más en común con los genes de petirrojo que con los genes autosómicos de cuco. Es natural, entonces, que los cromosomas Y del cuco deberían haber evolucionado para reflejar su experiencia peculiar, mientras que otros genes de cuco simultáneamente evolucionaron para reflejar su experiencia más general -un tipo de 'especiación' intragenómica incipiente a nivel cromosómico. Por esta razón es, de hecho, ampliamente asumido que los genes para el  mimetismo de los huevos de las especies adoptivas específicas se deben llevar en el cromosoma Y, mientras que los genes para adaptaciones parasitarias generales podrían ser llevadas en cualquier cromosoma.

http://cdn2.arkive.org/media/F5/F561701B-11F9-4ACA-99C7-EB54405F1B52/Presentation.Large/Brood-parasitism-of-robin-nest---robin-feeds-a-cuckoo-chick-Cuculus-canorus-mistaking-it-for-own-young.jpg
Erithacus rubecula (derecha) alimentando cría de Cuculus canorus (izquierda). Fuente.

viernes, 18 de septiembre de 2015

Capítulo 5.- El Replicador Activo de la Línea Germinal (93)

En el próximo capítulo se tratarán otras dificultades. Mientras tanto, termino este capítulo con una pequeña distracción que puede ser útil para ilustrar el 'punto de vista del gen' o del replicador en la evolución. Un aspecto atractivo de esta perspectiva aparece si miramos hacia atrás en el tiempo. Los replicadores de existencia frecuente hoy en día constituyen un subconjunto relativamente exitoso de los que han existido en el pasado. Un replicador dado en mí podría, en teoría, rastrearse hacia atrás a través de una línea recta de antepasados. Estos antepasados, y los entornos que proporcionan para el replicador, pueden ser considerados como la 'experiencia pasada' del replicador.

La experiencia pasada de fragmentos genéticos autosómicos en una especie es, estadísticamente hablando, similar. Consiste en un conjunto de organismos típicos de una especie, aproximadamente el 50 por ciento cuerpos machos y el 50 por ciento hembras, cuerpos que crecieron a través de un amplio espectro de edades, al menos hasta la edad reproductiva; y que incluye una buena mezcla
de genes 'acompañantes' al azar en otros loci. Los genes que existen en la actualidad tienden a ser los que son buenos para la supervivencia en ese conjunto estadístico de cuerpos, y en compañía de ese conjunto estadístico de genes acompañantes. Como veremos, es la selección a favor de las cualidades necesarias para la supervivencia en compañía de otros genes, seleccionados de manera similar, los que dan lugar a la aparición de 'genomas coadaptados'. Demostraré en el Capítulo 13 que se trata de una interpretación mucho más esclarecedora del fenómeno de la adaptación mutua que su alternativa, la de que 'el genoma coadaptado es la verdadera unidad de selección'.

Probablemente no hay dos genes en un organismo que tengan experiencias pasadas idénticas, aunque un par de genes enlazados puede estar cerca, y, mutantes aparte, todos los genes en un cromosoma Y han viajado juntos a través del mismo conjunto de órganos durante un gran número de generaciones. Sin embargo, la naturaleza exacta de la experiencia pasada de un gen es de menos interés que las generalizaciones que pueden hacerse acerca de las experiencias pasadas de todos los genes que existen en la actualidad. Por ejemplo, a pesar de lo variable que el conjunto de mis antepasados ​​pueda ser, todos ellos tenían en común que sobrevivieron al menos hasta la edad reproductiva, copularon por vía heterosexual y eran fértiles. N
o se puede hacer la misma generalización sobre el conjunto histórico de los cuerpos que no eran mis antepasados. Los organismos que proporcionaron la experiencia pasada de los genes existentes son un subconjunto no aleatorio de todos los organismos que alguna vez han existido.

viernes, 11 de septiembre de 2015

Capítulo 5.- El Replicador Activo de la Línea Germinal (92)

Rechazamos el genoma sexual completo como un candidato a replicador, debido a su alto riesgo de ser fragmentado en la meiosis. Un único nucleótido no sufre este problema, pero, como acabamos de ver,  plantea otro problema. No puede decirse que tenga un efecto fenotípico excepto en el contexto de los otros nucleótidos que lo rodean en su cistrón. No tiene sentido hablar del efecto fenotípico de la adenina. Pero es totalmente razonable hablar del efecto fenotípico de la sustitución de adenina por citosina en un locus determinado dentro de un cistrón determinado. El caso de un cistrón dentro de un genoma no es análogo. {92}. A diferencia de un nucleótido, un cistrón es lo suficientemente grande como para tener un efecto fenotípico coherente, relativamente, aunque no completamente, con independencia de donde se encuentra en el cromosoma (pero no independientemente de qué otros genes comparten su genoma). Para un cistrón, su contexto secuencial vis-a-vis con otros cistrones no es abrumadoramente importante en la determinación de su efecto fenotípico en comparación con sus alelos. Por otro lado, para el efecto fenotípico de un nucleótido,  su contexto secuencial lo es todo.

Bateson (1981) expresa el siguiente recelo acerca de la selección del replicador.

    Un carácter ganador se define en relación a otro, mientras que los replicadores genéticos se consideran en términos absolutos y atomizados. La dificultad salta a la vista si usted se pregunta, ¿qué es exactamente un replicador de Dawkins? Podría responder: 'Esa parte del material genético que establece la diferencia entre los caracteres ganadores y perdedores'. Usted habría establecido que un replicador debe definirse en relación a otra cosa. Alternativamente, su respuesta podría ser: 'Un replicador consta de todos los genes necesarios para la expresión del carácter superviviente'. En ese caso, se le carga con un concepto complejo y difícil de manejar. De cualquier manera, su respuesta mostraría lo engañoso que es pensar en replicadores como los átomos de la evolución.

Desde luego, me uniría a Bateson en rechazar la segunda de sus dos respuestas alternativas, la inmanejable.
Por otro lado, la primera de sus alternativas expresa exactamente mi posición, y yo no comparto las dudas de Bateson al respecto. Para mis propósitos, un replicador genético se define por referencia a sus alelos, pero esto no es una debilidad del concepto. O, si se considera que es una debilidad, es una debilidad que aqueja a toda la ciencia de la genética de poblaciones, no sólo a la idea particular de unidades genéticas de selección. Es una verdad fundamental, aunque no siempre percibida, que cada vez que un genetista estudia un gen 'para' cualquier carácter fenotípico, siempre se esta refiriendo a una diferencia entre dos alelos. Este es un tema recurrente a lo largo de este libro.

Para probar el pudín, déjenme mostrarles lo fácil que es usar el gen como unidad conceptual de selección, si bien admitiendo que sólo se define por comparación con sus alelos. Actualmente se acepta que un gen particularmente importante para la coloración oscura en la polilla manchada Biston betularia  ha aumentado en frecuencia en las zonas industriales, ya que produce fenotipos que son superiores en las zonas industriales (Kettlewell 1973). Al mismo tiempo, tenemos que admitir que este gen es sólo uno de los miles que son necesarios para que que se muestre la coloración oscura. Una polilla no puede tener alas oscuras si no tiene alas, y no puede tener alas a menos que tenga cientos de genes y cientos de factores ambientales igualmente necesarios. Pero todo esto es {93} irrelevante. La diferencia entre el fenotipo de la carbonaria y de la typica puede aún deberse a una diferencia en un locus, a pesar de que los mismos fenotipos no podrían existir sin la participación de miles de genes. Y es la misma diferencia que es la base de la selección natural. ¡Tanto los genetistas como la selección natural se refieren a diferencias! A pesar de la compleja base genética de las características que todos los miembros de una especie tienen en común, la selección natural  tiene que ver con las diferencias. El cambio evolutivo es un conjunto limitado de sustituciones en loci identificables.


Mimetismo diferencial de Biston betularia typica y carbonaria, sobre fondo claro y oscuro. Fuente.


Selección diferencial entre Betularia clara y oscura. Fuente.


viernes, 4 de septiembre de 2015

Capítulo 5.- El Replicador Activo de la Línea Germinal (91)

Como mínimo, ésta no es una forma útil de expresar lo que ocurre. Se {91} vuelve francamente engañosa si se sugiere al estudioso que la adenina en un locus está, en cierto sentido, aliada con la adenina en otros loci, empujando juntas por un equipo de adenina. Si hay algún sentido en el que las purinas y pirimidinas compitan entre sí por los loci heterocigotos, es que la lucha en cada locus esté aislada de la lucha en otros loci. El biólogo molecular puede, para sus propios objetivos importantes (Ghargaff citado en Judson 1979), contar adeninas y citosinas en el conjunto del genoma, pero hacerlo es un ejercicio ocioso para el estudioso de la selección natural. En todo caso, si son competidores, lo son por cada locus separadamente. Son indiferentes a la suerte de sus réplicas exactas en otros loci (véase también el Capítulo 8).

Pero hay una razón más interesante para rechazar el concepto del nucleótido egoísta, a favor de alguna entidad replicante más grande. Todo el propósito de la búsqueda de una 'unidad de selección' es descubrir un actor adecuado que interprete el papel principal en nuestras metáforas propuestas. Nos fijamos en una adaptación y queremos decir, 'Es por el bien de ...'. Nuestra búsqueda en este capítulo es la forma correcta de completar la frase. Está ampliamente admitido que el error grave se deriva de la asunción acrítica de que las adaptaciones son para el bien de la especie. Espero que sea capaz de mostrar, en este libro, que aún otros peligros teóricos, aunque menores, acechan a la suposición de que las adaptaciones son para el bien del organismo individual. Lo que sugiero aquí es que, ya que debemos hablar de adaptaciones como para el bien de algo, ese algo correcto es el replicador activo de la línea germinal. Y si bien puede no ser estrictamente un error decir que la adaptación es por el bien de los nucleótidos, es decir, el replicador más pequeño responsable de las diferencias fenotípicas implicadas ​​en el cambio evolutivo, no es útil  hacerlo.


Vamos a utilizar la metáfora del poder. Un replicador activo es un trozo de genoma que, cuando se compara con sus alelos, ejerce un poder fenotípico sobre su mundo, de tal manera que su frecuencia aumenta o disminuye respecto a la de sus alelos. Si bien tiene pleno sentido, indudablemente, hablar de un único nucleótido como ejerciendo poder en este sentido, es mucho más útil, puesto que el nucleótido sólo ejerce un tipo dado de poder cuando está incluído en una unidad más grande, tratar la unidad más grande en la medida que ejerce el poder y, por lo tanto, altera la frecuencia de sus copias. Podría pensarse que el mismo argumento podría usarse para justificar el tratamiento de una unidad aún mayor, por ejemplo todo el genoma, como la unidad que ejerce el poder. Esto no es así, -al menos para los genomas sexuales.