La
probabilidad de que una decisión de ocupar conduzca a algún resultado
particular, como el deseado de 'quedarse sola', depende de la
frecuencia global en la población de las decisiones de ocupar. Si
se está dando una gran cantidad de ocupaciones en la población, el
número de madrigueras abandonadas disponibles disminuye, y aumentan las
posibilidades de que una avispa que decida ocupar se encuentre en la posición no deseada de unirse a una ocupante. Nuestro
modelo nos permite tomar cualquier valor dado de p, la frecuencia
global de excavación en la población, y predecir la probabilidad de
que un individuo que decida cavar, o uno que decida ocupar, terminará ese episodio en cada uno de los cuatro resultados. Por tanto, el saldo medio de una avispa que decide cavar puede
predecirse para cualquier frecuencia de cavado que, frente a
la de ocupación, presente la población en su conjunto. Es
simplemente la suma, sobre los cuatro resultados, del saldo esperado
dado por cada resultado, multiplicado por la probabilidad de que una
avispa que cave termine con ese resultado. La
suma equivalente puede calcularse para una avispa que decida ocupar, otra vez para cualquier frecuencia dada de cavar frente a
ocupar en la población. Por
último, haciendo ciertos supuestos adicionales plausibles que se
enumeran en el documento original, se resuelve una ecuación para hallar
la frecuencia de cavar en la población en la que el beneficio
esperado promedio de una avispa que cava es exactamente igual al
beneficio esperado promedio de una avispa que ocupa. Esa es nuestra frecuencia de equilibrio predicha, que podemos comparar con la frecuencia observada en la población silvestre. Nuestra
expectativa es que la población real debe asentarse o en la
frecuencia de equilibrio o en el proceso de evolucionar
hacia la frecuencia de equilibrio. El
modelo también predice la proporción de avispas que terminan en
cada uno de los cuatro resultados de equilibrio, y estas cifras
también se pueden comprobar con los datos observados. El equilibrio del modelo es teóricamente estable en lo que predice que
las desviaciones del equilibrio serán corregidas por la selección
natural.
Brockmann estudió dos poblaciones de avispas, una en Michigan y otra en New Hampshire. Los resultados fueron diferentes en las dos poblaciones. En
Michigan el modelo falló en predecir los resultados observados, y
llegamos a la conclusión de que era absolutamente inaplicable a la
población de Michigan, por razones desconocidas, como se explica en el
documento original (¡el hecho de que la población de Michigan se ha
extinguido es probablemente fortuito!). La población de New Hampshire, por otro lado, encajó convincentemente en las predicciones del modelo. La frecuencia de equilibrio predicho de entrada {126} era 0,44, y la frecuencia observada fue de 0,41. El modelo también predijo con éxito la frecuencia de cada uno de los cuatro 'desenlaces' en la población de New Hampshire. Y tal
vez lo más importante, el saldo medio resultante de las decisiones
de cavar no difirió significativamente del saldo medio resultante de las decisiones de ocupar.
viernes, 29 de abril de 2016

viernes, 22 de abril de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (124)
Lo
que precipitaba el abandono del nido por el propietario original
parecía normalmente ser un inconveniente temporal, y un nido abandonado
constituía un recurso deseable que era pronto utilizado por otra
avispa. Una avispa que entra en una madriguera abandonada se ahorra los costes asociados con la excavación de una. Por otra parte, se corre el riesgo de que la madriguera en la que se entra no se haya abandonado. Todavía puede contener al propietario original, o puede contener otra avispa ocupadora que llegó primero. En cualquiera de estos casos, la avispa que entra se expone a un alto
riesgo de una lucha costosa, y a un alto riesgo de que ella no sea la que ponga el huevo al final de un período costoso de aprovisionar
el nido.
Desarrollamos y probamos un modelo matemático (Brockmann, Grafen y Dawkins 1979) que distingue cuatro resultados o destinos diferentes que podrían acontecer a una avispa en cualquier episodio de anidación particular.
1 Podría verse obligada a abandonar el nido, por ejemplo por un ataque de hormigas.
2 Podría terminar sola, la única responsable del nido.
3 Podría unírsele una segunda avispa.
4 Podría unirse a una avispa ya instalada.
Los resultados de 1 a 3 podrían ser el resultado de una decisión inicial de cavar una madriguera. Las resultados de 2 a 4 podrían ser el resultado de una decisión inicial de ocupar. Los datos de Brockmann nos permitieron medir, en términos de probabilidad de poner un huevo por unidad de tiempo, los 'beneficios' relativos asociados a cada uno de estos cuatro resultados. Por ejemplo, en una población estudiada en Exeter, New Hampshire, el resultado 4, 'unión', tuvo una puntuación de rentabilidad de 0,35 huevos por 100 horas. Esta puntuación se obtuvo de media sobre todas las ocasiones en que las avispas terminaron en ese resultado. Para calcularlo, simplemente añadimos el número total de huevos puestos por las avispas que, por el motivo que fuera, se habían unido a una avispa ya instalada, y dividido por el tiempo total dedicado por las avispas en nidos a los que se habían unido. La puntuación correspondiente a las avispas que comenzaron solas, pero a las que se les unieron posteriormente otras avispas, fue 1.06 huevos por cada 100 horas, y la de las avispas que se quedaron solas fue de 1.93 huevos por 100 horas.
Si una avispa pudiera controlar con cuál de los cuatro resultados acabaría, debería 'preferir' terminar sola, puesto que este resultado llevó a la tasa de rentabilidad más alta, pero ¿cómo podría conseguirlo? Un supuesto clave de nuestro modelo era que los cuatro resultados no correspondían a las decisiones que estaban disponibles para una avispa. Una avispa puede 'decidir' cavar o entrar. No puede decidir que se le asocie otra o estar sola más de lo que un hombre puede decidir no tener cáncer. Estos son resultados que dependen de circunstancias fuera del control del individuo. En este caso dependen de lo que hacen las otras avispas en la población. {125} Pero al igual que un hombre puede reducir estadísticamente sus posibilidades de contraer cáncer tomando la decisión de dejar de fumar, del mismo modo la 'tarea' de una avispa es tomar la única decisión abierta a ella -cavar u ocupar- de tal manera que se maximice su posibilidades de acabar en un resultado deseable. Más estrictamente, buscamos el valor estable de p, p*, de manera que cuando p* de las decisiones en la población son decisiones de cavar, ningún gen mutante que conduzca a la adopción de cualquier otro valor de p será favorecido por la selección natural.
viernes, 15 de abril de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (123)
Dije que los dos extremos estaban unidos por un continuo. Quiero
decir que la frecuencia de la población estable de excavación, p* (70
por ciento o el que sea), se podría lograr por cualquiera de un gran
número de combinaciones de estrategias individuales puras y mixtas. Puede
haber una amplia distribución de los valores en los sistemas nerviosos
individuales en la población, incluyendo cavadoras puras y ocupadoras puras. Pero,
siempre que la frecuencia total de la excavación en la población sea
igual al crítico valor p*, seguiría siendo cierto que cavar y ocupar son igualmente exitosos, y la selección natural no actuaría para
cambiar la frecuencia relativa de los dos subrutinas en la próxima generación. La población estaría en un estado evolutivamente estable. La analogía con la teoría de Fisher (1930a) de equilibrio en la proporción de sexos será clara.
Pasando de lo concebible a la real, los datos de Brockmann demuestran de manera concluyente que estas avispas no son polimórficas en ningún sentido simple. Los individuos a veces cavaron y a veces ocuparon. Ni siquiera pudimos detectar ninguna tendencia estadística por la que los individuos se especialicen en cavar u ocupar. Evidentemente, si la población de avispas está en un estado mixto evolutivamente estable, se encuentra lejos del extremo polimorfismo del continuo. Si es en el otro extremo -todos los individuos ejecutan el mismo programa estocástico- o si existe alguna mezcla más compleja de los programas individuales puros y mixtos, no lo sabemos. Es uno de los mensajes centrales de este capítulo que no necesitábamos saber para nuestro propósito de investigación. Puesto que nos abstuvimos de hablar de éxito individual, sino que en su lugar pensamos en el éxito de la subrutina como media de todos los individuos, hemos sido capaces de desarrollar y probar un modelo exitoso de la EEE mixta que deja abierta la pregunta de dónde se sitúan nuestras avispas a lo largo del continuo. Volveré sobre este punto tras exponer algunos hechos pertinentes y después de esbozar el modelo en sí.
Cuando una avispa cava una madriguera, puede quedarse y provisionarla, o puede abandonarla. Las razones para el abandono de los nidos no siempre eran evidentes, pero incluían la invasión de hormigas y otros extraños indeseables. Una avispa que se muda a una madriguera que otra ha cavado podría descubrir que la propietaria original todavía está en la residencia. En este caso se dice que se ha unido a la anterior propietaria, y las dos avispas suelen trabajar en el mismo nido durante un tiempo, ambas aportando catídidos independientemente. Alternativamente, la avispa ocupadora puede tener la suerte de dar con un nido que ha sido abandonado por su propietaria original, en cuyo caso lo tiene para ella sola. La evidencia indica que las avispas ocupadoras no pueden distinguir un nido que ha sido abandonado de uno que todavía está ocupado por su propietaria anterior. Este hecho no es tan sorprendente como pueda parecer, ya que ambas avispas pasan la mayor parte de su tiempo a la caza, por lo que dos {124} avispas que 'comparten' el mismo nido rara vez se encuentran. Cuando se encuentran, luchan, y en todo caso sólo una de ellas tiene éxito en poner un huevo en el nido en disputa.
viernes, 8 de abril de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (122)
Hay en teoría dos clases de EEE mixtas, o más bien dos extremos con un continuo entre ellas. El primer extremo es un polimorfismo equilibrado. En
este caso, si queremos usar las iniciales 'EEE', la E inicial debe ser
pensada como el estado de la población, más que como una
estrategia del individuo. Si
se concreta esta posibilidad, habría dos clases distintas de avispas, las cavadoras y las ocupadoras, que tenderían a ser igual de exitosas. Si no fueran igualmente exitosas, la selección natural tendería a eliminar la menos exitosa de la población. Es
demasiado esperar que, por pura coincidencia, los costes y beneficios
netos de cavar se equilibren exactamente con los costes y
beneficios netos de ocupar. Más bien, estamos invocando la selección dependiente de la frecuencia. Postulamos una proporción de equilibrio crítico de cavadoras, p*, en la que los dos tipos de avispas tienen el mismo éxito. Entonces,
si la proporción de cavadoras en la población se encuentra por debajo
de la frecuencia crítica, las excavadoras serán favorecidas por la
selección, mientras que si se eleva por encima de la frecuencia crítica, las ocupadoras serán favorecidas. De esta manera la población se situaría alrededor de la frecuencia de equilibrio.
Es fácil pensar en razones plausibles por las que el beneficio podría así ser dependiente de la frecuencia. Es evidente que, dado que las nuevas madrigueras llegan a existir sólo cuando las cavadoras cavan, cuantas menos cavadoras haya en la población, más fuerte será la competencia por las madrigueras entre las ocupadoras, y menor el beneficio para una ocupadora típica. Por el contrario, cuando las cavadoras son muy numerosas, las madrigueras disponibles abundan y las ocupadoras tienden a prosperar. Pero, como he dicho, el polimorfismo dependiente de la frecuencia es sólo uno de los extremos de un continuo. Pasamos ahora al otro extremo.
En el otro extremo del continuo no hay polimorfismo entre individuos. En el estado estable todas las avispas obedecen el mismo programa, pero ese programa es en sí mismo una mezcla. Cada avispa está obedeciendo la instrucción, 'Cava con probabilidad p, ocupa con probabilidad I-p'; por ejemplo, 'Cavar en el 70 por ciento de las ocasiones, ocupar en el 30 por ciento de las ocasiones'. Si esto se considera como un 'programa', quizá podríamos hacer referencia a la excavación y a la ocupación en sí mismas como 'subrutinas'. Cada avispa está equipada con dos subrutinas. Está programada para elegir una u otra en cada ocasión con una probabilidad característica, p.
Aunque aquí no hay polimorfismo de cavadoras y ocupadoras, puede seguirse dando algo matemáticamente equivalente a la selección dependiente de la frecuencia. Así es cómo funcionaría. Al igual que antes, hay una frecuencia de población crítica de cavar, p*, en la que ocupar produciría exactamente la misma 'rentabilidad' que cavar. p* es, entonces, la probabilidad de excavación evolutivamente estable. {123} Si la probabilidad estable es 0.7, los programas que instruyen avispas a seguir una regla diferente, digamos 'Cava con probabilidad 0,75', o 'Cava con probabilidad 0,65', lo haría menos bien. Hay toda una familia de 'estrategias mixtas' de la forma 'Cava con probabilidad p, ocupa con probabilidad I-p' y sólo una de ellas es la EEE.
viernes, 1 de abril de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (121)
Lo que Maynard Smithha hecho, junto con Price y Parker (Maynard Smith & Price 1973; Maynard Smith & Parker 1976), es tomar la teoría matemática de los juegos y resolver el aspecto crucial en el que la teoría debe ser modificada para adaptarse al propósito darwinista. El concepto de EEE, una estrategia que funcione relativamente bien contra copias de sí misma, es el resultado. Ya he hecho dos intentos de promover la importancia del concepto de EEE y explicar su amplia aplicabilidad en etología (Dawkins 1976a, 1980), y no voy a repetirme innecesariamente aquí. Aquí mi objetivo es el desarrollo de la relevancia de esta forma de pensar para el tema del presente libro, el debate sobre el nivel en el que actúa la selección natural. Comenzaré haciendo un recuento de una parte específica de la investigación que utiliza el concepto de EEE. Todos los hechos que expondré son de las observaciones de campo de la Dra. Jane Brockmann, informadas en detalle en otra parte, y que mencioné brevemente en el capítulo 3. Para poder relacionarla con el mensaje de este capítulo, antes tengo que dar una breve reseña de la propia investigación.
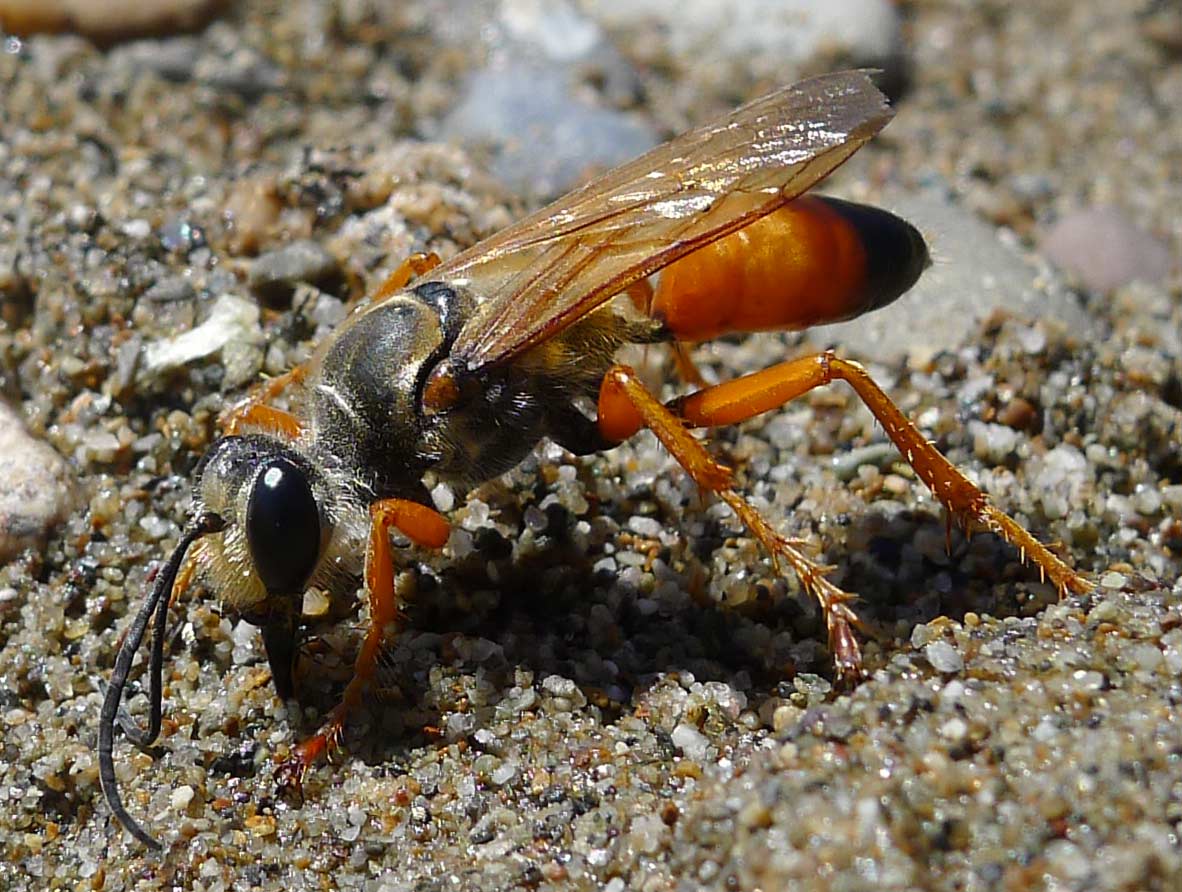 |
| Sphex Ichneumoneus. Fuente. |
 |
| Sphex Ichneumoneus aprovisionando su nido con un catídido. Fuente: Stephen Cresswell. |
Si la primera posibilidad fuera correcta, todas las avispas pueden programarse con la misma {122} regla condicional: 'Si X es verdadera, cavar. De lo contrario, ocupar'; por ejemplo, 'si ocurre que eres una pequeña avispa, cava. De lo contrario, usa tu tamaño superior para ocupar el nido de otra avispa'. Pero no hemos podido encontrar ninguna evidencia para un programa condicional de éste o de cualquier otro tipo. En su lugar, nos convencimos de que la segunda posibilidad, la EEE mixta, se adaptaba a los hechos.
viernes, 25 de marzo de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (120)
En un modelo particular de combate animal, por ejemplo,
Maynard Smith (1972, p. 19) postuló cinco 'estrategias' alternativas
(programas): {120}
Para el propósito de una simulación por ordenador era necesario definir estas cinco 'estrategias' más rigurosamente, pero para la comprensión humana es preferible la simple notación del imperativo inglés. La cuestión importante de este capítulo es que las cinco estrategias fueran consideradas como si fueran entidades (en lugar de animales individuales) compitiendo por derecho propio. Se establecieron reglas en la simulación por ordenador para la reproducción de las estrategias exitosas (presumiblemente los individuos adoptantes de estas estrategias exitosas se reproducían y transmitían tendencias genéticas para adoptar esas mismas estrategias, pero fueron ignorados los detalles de esto). La pregunta era acerca del éxito de la estrategia, no del éxito individual.
Una cuestión importante adicional es que Maynard Smith estaba buscando la 'mejor' estrategia sólo en un sentido especial. De hecho, estaba buscando una 'estrategia evolutivamente estable' o EEE. La EEE se ha definido con rigor (Maynard Smith 1974), pero a grandes rasgos puede ser resumida como una estrategia que tiene éxito al competir con copias de sí misma. Puede parecer chocante destacar esta propiedad, pero el razonamiento es realmente muy poderoso. Si un programa o estrategia es exitoso, esto significa que sus copias tenderán a ser más numerosas en la población de programas y en última instancia, puede llegar a ser casi universal. Por lo tanto, llegará a estar rodeado de copias de sí mismo. Si se quiere seguir siendo universal, por consiguiente, debe tener éxito al competir contra copias de sí mismo, tener éxito en comparación con raras estrategias diferentes que puedan surgir por mutación o invasión. Un programa que no fuera en este sentido evolutivamente estable no duraría mucho tiempo en el mundo, por lo que no sería objeto de nuestra explicación.
En el caso de las cinco estrategias mencionadas anteriormente, Maynard Smith quería saber qué pasaría en una población que contuviera copias de los cinco programas. ¿Habría uno de los cinco que, si llegase a predominar, conservaría su superioridad numérica frente a cualquiera? Llegó a la conclusión de que el programa número 3 es una EEE: Cuando ocurre que pasa a ser muy numeroso en la población, no hay otro programa de la lista que lo haga mejor que el programa 3 en sí (en realidad hay un problema en este ejemplo particular -Dawkins 1980, pág. 7- pero voy a ignorarlo aquí). Cuando hablamos de un programa que lo hace bien o que es un éxito, estamos teóricamente midiendo el éxito como la capacidad para propagar copias del mismo programa en la siguiente generación: en realidad es probable que esto {121} signifique que un programa exitoso sea aquel que promueva la supervivencia y la reproducción del animal que lo adopta.
- Lucha convencionalmente; retírate si el oponente ha demostrado ser más fuerte o si el oponente se intensifica.
- Lucha aumentando la intensidad. Retírate sólo si herido.
- Empieza convencionalmente. Intensifica sólo si el oponente se intensifica.
- Empieza convencionalmente. Intensifica sólo si el oponente sigue luchando convencionalmente.
- Lucha aumentando la intensidad. Retírate antes de hacerte daño si el oponente hace lo mismo.
Para el propósito de una simulación por ordenador era necesario definir estas cinco 'estrategias' más rigurosamente, pero para la comprensión humana es preferible la simple notación del imperativo inglés. La cuestión importante de este capítulo es que las cinco estrategias fueran consideradas como si fueran entidades (en lugar de animales individuales) compitiendo por derecho propio. Se establecieron reglas en la simulación por ordenador para la reproducción de las estrategias exitosas (presumiblemente los individuos adoptantes de estas estrategias exitosas se reproducían y transmitían tendencias genéticas para adoptar esas mismas estrategias, pero fueron ignorados los detalles de esto). La pregunta era acerca del éxito de la estrategia, no del éxito individual.
Una cuestión importante adicional es que Maynard Smith estaba buscando la 'mejor' estrategia sólo en un sentido especial. De hecho, estaba buscando una 'estrategia evolutivamente estable' o EEE. La EEE se ha definido con rigor (Maynard Smith 1974), pero a grandes rasgos puede ser resumida como una estrategia que tiene éxito al competir con copias de sí misma. Puede parecer chocante destacar esta propiedad, pero el razonamiento es realmente muy poderoso. Si un programa o estrategia es exitoso, esto significa que sus copias tenderán a ser más numerosas en la población de programas y en última instancia, puede llegar a ser casi universal. Por lo tanto, llegará a estar rodeado de copias de sí mismo. Si se quiere seguir siendo universal, por consiguiente, debe tener éxito al competir contra copias de sí mismo, tener éxito en comparación con raras estrategias diferentes que puedan surgir por mutación o invasión. Un programa que no fuera en este sentido evolutivamente estable no duraría mucho tiempo en el mundo, por lo que no sería objeto de nuestra explicación.
En el caso de las cinco estrategias mencionadas anteriormente, Maynard Smith quería saber qué pasaría en una población que contuviera copias de los cinco programas. ¿Habría uno de los cinco que, si llegase a predominar, conservaría su superioridad numérica frente a cualquiera? Llegó a la conclusión de que el programa número 3 es una EEE: Cuando ocurre que pasa a ser muy numeroso en la población, no hay otro programa de la lista que lo haga mejor que el programa 3 en sí (en realidad hay un problema en este ejemplo particular -Dawkins 1980, pág. 7- pero voy a ignorarlo aquí). Cuando hablamos de un programa que lo hace bien o que es un éxito, estamos teóricamente midiendo el éxito como la capacidad para propagar copias del mismo programa en la siguiente generación: en realidad es probable que esto {121} signifique que un programa exitoso sea aquel que promueva la supervivencia y la reproducción del animal que lo adopta.
viernes, 18 de marzo de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (119)
Una
persona que observase y analizase el comportamiento de una computadora cuyo
programa se hubiera perdido podría, en principio, ser capaz de reconstruir
el programa o su equivalente funcional. Las últimas cuatro palabras son cruciales. Por
su propia conveniencia escribiría el programa reconstruido en algún
lenguaje particular -Algol, Fortran, un diagrama de flujo, un
subconjunto riguroso particular del Inglés-. Pero no hay manera de saber en cuál, si es que es en alguno, de estos idiomas fue escrito el programa originalmente. Pudo haber sido escrito directamente en lenguaje máquina, o 'integrado' en la maquinaria de la computadora durante su fabricación. En todo caso, el
resultado final es el mismo: el equipo realiza alguna
tarea útil, como el cálculo de raíces cuadradas, y un ser humano puede
tratar eficazmente el ordenador como si obedeciera un conjunto de
instrucciones imperativas escritas en un lenguaje que es conveniente que entiendan los humanos. Creo que, para muchos propósitos, tales 'explicaciones software' de los
mecanismos del comportamiento son tan válidas y útiles como las más obvias 'explicaciones de hardware' expuestas por los neurofisiólogos.
Un biólogo que observa un animal está en cierto modo en la misma posición que un ingeniero observando un ordenador que ejecuta un programa perdido. El animal se comporta en lo que parece ser una manera organizada, decidida, como si estuviera obedeciendo un programa, una secuencia ordenada de instrucciones imperativas. El programa del animal en realidad no se ha perdido, porque nunca fue escrito. En su lugar, la selección natural improvisó el equivalente de un programa en código máquina integrado, al favorecer las mutaciones que alteraron sucesivas generaciones de sistemas nerviosos para comportarse (y para aprender a cambiar su comportamiento) de manera apropiada. Apropiada significa, en este caso, apropiada para la supervivencia y la propagación de los genes en cuestión. Sin embargo, aunque no se haya escrito ningún programa, al igual que en el caso de la computadora que ejecuta un programa que se ha perdido, para nosotros es conveniente pensar en el animal como 'obedeciendo' a un programa 'escrito' en un lenguaje de fácil comprensión tal como Inglés. Una de las cosas que podremos hacer es imaginar programas alternativos o subrutinas que puedan 'competir' entre sí por el 'tiempo del computador' en el sistema nervioso de la población. Aunque debemos tratar a la analogía con circunspección, como demostraré, podemos imaginar útilmente la selección natural como actuando directamente sobre una acumulación de programas o subrutinas alternativos, y tratar a los organismos individuales como ejecutores temporales y propagadores de estos programas alternativos.
Un biólogo que observa un animal está en cierto modo en la misma posición que un ingeniero observando un ordenador que ejecuta un programa perdido. El animal se comporta en lo que parece ser una manera organizada, decidida, como si estuviera obedeciendo un programa, una secuencia ordenada de instrucciones imperativas. El programa del animal en realidad no se ha perdido, porque nunca fue escrito. En su lugar, la selección natural improvisó el equivalente de un programa en código máquina integrado, al favorecer las mutaciones que alteraron sucesivas generaciones de sistemas nerviosos para comportarse (y para aprender a cambiar su comportamiento) de manera apropiada. Apropiada significa, en este caso, apropiada para la supervivencia y la propagación de los genes en cuestión. Sin embargo, aunque no se haya escrito ningún programa, al igual que en el caso de la computadora que ejecuta un programa que se ha perdido, para nosotros es conveniente pensar en el animal como 'obedeciendo' a un programa 'escrito' en un lenguaje de fácil comprensión tal como Inglés. Una de las cosas que podremos hacer es imaginar programas alternativos o subrutinas que puedan 'competir' entre sí por el 'tiempo del computador' en el sistema nervioso de la población. Aunque debemos tratar a la analogía con circunspección, como demostraré, podemos imaginar útilmente la selección natural como actuando directamente sobre una acumulación de programas o subrutinas alternativos, y tratar a los organismos individuales como ejecutores temporales y propagadores de estos programas alternativos.
viernes, 11 de marzo de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (118)
7.- ¿Avispa Egoísta o Estrategia Egoísta?
Este es un capítulo sobre metodología de la investigación práctica. Habrá los que acepten la tesis de este libro a un nivel teórico, pero que objetarán que, en la práctica, a los investigadores de campo les resultará útil centrar su atención sobre la ventaja individual. En un sentido teórico, dirán, es correcto ver el mundo natural como un campo de batalla de replicadores, pero en la investigación real estamos obligados a medir y comparar la aptitud darwiniana de organismos individuales. Quisiera exponer en detalle un estudio particular de investigación para mostrar que éste no es necesariamente el caso. En lugar de comparar el éxito de los organismos individuales, a menudo es más útil en la práctica comparar el éxito de las 'estrategias' (Maynard Smith 1974) o de los 'programas' o 'subrutinas', promediadas entre los individuos que las usan. De los muchos elementos de investigación que podría haber expuesto, por ejemplo, el trabajo sobre el 'forrajeo óptimo' de las moscas del estiércol (Pyke, Pulliam y Charnov 1977; Krebs 1978), Parker (1978a), o cualquiera de los ejemplos revisados por Davies (1982), elijo el estudio de Brockmann sobre avispas excavadoras simplemente porque estoy muy familiarizado con él (Brockmann, Grafen y Dawkins 1979; Brockmann y Dawkins 1979; Dawkins y Brockmann 1980).
Voy a utilizar la palabra 'programa' en exactamente el mismo sentido que Maynard Smith utiliza 'estrategia'. Prefiero 'programa' a 'estrategia' porque la experiencia advierte que 'estrategia' es muy probable que sea malinterpretada, en al menos dos formas diferentes (Dawkins 1980). Y dicho sea de paso, siguiendo el Diccionario Inglés de Oxford y el uso estándar americano, prefiero 'programa' a 'programme', que parece ser una acepción del siglo XIX importada de los franceses. Un programa (o estrategia) es una receta para la acción, un conjunto de instrucciones teóricas que un animal parece estar 'obedeciendo', al igual que una computadora obedece a su programa. Un programador de computadoras escribe su programa en un lenguaje como Algol o Fortran, que puede parecer un poco como el imperativo inglés. La maquinaria de la computadora está configurada de modo que se comporta como si {119} obedeciera estas instrucciones de cuasi-Inglés. Antes de que se pueda ejecutar, el programa se traduce (por la computadora) en un conjunto de instrucciones en 'lenguaje máquina' elemental, más cercano al hardware y más lejano de la comprensión humana. En cierto sentido, son estas instrucciones de lenguaje-máquina las que en realidad son obedecidas y no el programa cuasi-Inglés, aunque en otro sentido ambos son obedecidos, y aún en otro sentido ¡ninguno lo es!
viernes, 4 de marzo de 2016
Capítulo 6.- Organismos, Grupos y Memes: ¿Replicantes o vehículos? (y 117)
La
mayoría de gente estaría de acuerdo en que éste no es un buen
argumento contra la genética mendeliana, y tampoco es un buen
argumento en contra de tratar el gen como la unidad de selección. El error que tanto Gould como Cannon cometen es que no distinguen la genética de la embriología. El mendelismo es una teoría de la herencia de partículas, no de la embriología de partículas. El
argumento de Cannon y Gould es válido contra una embriología de partículas {117} y a favor de una mezcla embriológica. Yo mismo
doy argumentos similares en otras partes de este libro (por ejemplo, la analogía del pastel
en la sección del Capítulo 9 llamada 'La pobreza del preformacionismo'). Los genes de hecho se mezclan, en cuanto a sus efectos sobre el desarrollo de fenotipos se refiere. Pero, como ya he enfatizado lo suficiente, no se mezclan, sino que se
replican y se recombinan de generación en generación. Esto es lo que importa para el genetista, y también es lo que importa para el estudioso de las unidades de selección.
Gould continúa:
Gould aquí se acerca más a la verdad, pero la verdad es más sutil, como espero demostrar en el capítulo 13. El tema fue aludido en el capítulo anterior. En pocas palabras, el sentido en que puede decirse que los genes se organizan y forman alianzas es el siguiente. La selección favorece aquellos genes que tienen éxito en presencia de otros genes, que a su vez tienen éxito en presencia de los primeros. Por lo tanto los conjuntos mutuamente compatibles de genes surgen en acervos génicos. Esto es más sutil y más útil que decir que 'al objeto resultante lo llamamos un cuerpo'. Por supuesto que los genes no son visibles directamente a la selección. Obviamente son seleccionados en función de sus efectos fenotípicos, y lo cierto es que sólo puede decirse que tienen efectos fenotípicos en concierto con cientos de otros genes. Pero la tesis de este libro es que no debemos quedar atrapados en el supuesto de que la mejor manera de ver esos efectos fenotípicos sea que vayan cuidadosamente envueltos en cuerpos discretos (u otros vehículos discretos). La doctrina del fenotipo extendido es que el efecto fenotípico de un gen (replicador genético) es mejor visto como un efecto sobre el mundo en general, y sólo de manera incidental en el organismo individual -o cualquier otro vehículo- en el que pase a asentarse. {118}
Gould continúa:
Así que las partes no son genes transcitos, y la selección no opera nunca directamente en las partes. Acepta o rechaza organismos enteros, porque los conjuntos de partes, interactuando de maneras complejas, confieren ventajas. La imagen de los genes individuales, trazando el curso de su propia supervivencia, tiene poca relación con la genética del desarrollo tal como la entendemos. Dawkins necesitará otra metáfora: genes organizándose, formando alianzas, mostrando deferencia por una oportunidad de unirse a un pacto, calibrando entornos probables. Pero cuando amalgamas tantos genes y los atas juntos en cadenas jerárquicas de acción mediatizadas por ambientes, al objeto resultante lo llamamos un cuerpo.
Gould aquí se acerca más a la verdad, pero la verdad es más sutil, como espero demostrar en el capítulo 13. El tema fue aludido en el capítulo anterior. En pocas palabras, el sentido en que puede decirse que los genes se organizan y forman alianzas es el siguiente. La selección favorece aquellos genes que tienen éxito en presencia de otros genes, que a su vez tienen éxito en presencia de los primeros. Por lo tanto los conjuntos mutuamente compatibles de genes surgen en acervos génicos. Esto es más sutil y más útil que decir que 'al objeto resultante lo llamamos un cuerpo'. Por supuesto que los genes no son visibles directamente a la selección. Obviamente son seleccionados en función de sus efectos fenotípicos, y lo cierto es que sólo puede decirse que tienen efectos fenotípicos en concierto con cientos de otros genes. Pero la tesis de este libro es que no debemos quedar atrapados en el supuesto de que la mejor manera de ver esos efectos fenotípicos sea que vayan cuidadosamente envueltos en cuerpos discretos (u otros vehículos discretos). La doctrina del fenotipo extendido es que el efecto fenotípico de un gen (replicador genético) es mejor visto como un efecto sobre el mundo en general, y sólo de manera incidental en el organismo individual -o cualquier otro vehículo- en el que pase a asentarse. {118}
Suscribirse a:
Entradas (Atom)