En el artículo original (Brockmann, Grafen y
Dawkins 1979) se
establece claramente, y debe repetirse aquí, que el método que usamos dependía
de algunos supuestos. Asumimos,
por ejemplo, que la elección de una subrutina por parte de una avispa en cualquier
ocasión particular no afectó su tasa de éxito o supervivencia después
del final del episodio en cuestión. Por
tanto, se asumió que los costes de excavación quedaban reflejados totalmente en
el tiempo dedicado a los episodios de excavación, y los costes de
entrada quedaban reflejados en el tiempo dedicado en los episodios de entrada. Si
el acto de cavar hubiera impuesto un cierto coste adicional, por ejemplo
un riesgo de desgaste de las extremidades, acortando la esperanza de
vida, nuestra contabilidad sencilla
tiempo-coste tendría que ser modificada. Las
tasas de éxito de las subrutinas de excavación y de entrada tendrían
que ser expresadas, no en huevos por hora, sino en huevos por 'coste de
oportunidad'. El
coste de oportunidad aún podría ser medido en unidades de tiempo, pero
el tiempo de excavación tendría que ser ampliado en una moneda más
costosa que el tiempo de entrar, ya que cada hora pasada en excavar
acorta la expectativa de vida efectiva de la avispa. En tales circunstancias, podría ser necesario, a pesar de todas las
dificultades, pensar en términos de éxito individual en lugar de éxito
de la subrutina.
Es por este tipo de razón que Clutton-Brock et al. (1982)
son probablemente inteligentes en su ambición de medir las tasas de éxito
de toda la vida reproductiva de los machos de los ciervos rojos
individuales. En
el caso de las avispas de Brockmann, tenemos razones para pensar que
nuestras suposiciones eran correctas, y que estábamos justificados en
ignorar el éxito individual y en concentrarnos en el éxito de la subrutina. Por
tanto, lo que N.B. Davies, en una conferencia, llama jocosamente el 'método
Oxford' (medir el éxito de la subrutina) y el 'método Cambridge' (medir el
éxito individual) puede cada uno justificarse en circunstancias diferentes.
No estoy diciendo que el método Oxford siempre deba utilizarse. El mismo hecho de que a veces es preferible es suficiente para
responder a la afirmación de que los investigadores de campo interesados
en medir los costes y beneficios siempre tienen que pensar en términos
de costes y beneficios individuales.
Cuando se llevan a cabo torneos de ajedrez de ordenador, un profano podría imaginar que un equipo juega contra otro. Es más pertinente describir el torneo como una competición entre programas. Un
buen programa batirá constantemente un programa pobre, y no establece ninguna
diferencia cuál computadora física está ejecutando cada programa. De
hecho, los dos programas podrían intercambiar equipos físicos cada partida, cada uno funcionando alternativamente en un IBM y en un
equipo ICL, y el resultado al final del torneo será el mismo que si un
programa se ejecutara continuamente en el IBM y el otro en el ICL. Del
mismo modo, para volver a la analogía del principio de este capítulo, la
subrutina de excavación 'se ejecuta' en un gran número de diferentes
sistemas nerviosos de avispas físicas. Entrar
es el nombre de una subrutina rival {130} que también se ejecuta en muchos
sistemas nerviosos de avispas diferentes, incluyendo algunos de los mismos
sistemas nerviosos físicos que, en otros momentos, ejecutan la
subrutina de excavación. Así
como una computadora IBM o ICL particular funciona como el medio físico a través
del cual cualquiera de una variedad de programas de ajedrez puede exteriorizar sus habilidades, del mismo modo una avispa individual es el medio
físico a través del cual expresa su comportamiento característico, a veces una subrutina de excavación, otras veces una subrutina de entrada.
viernes, 27 de mayo de 2016

viernes, 20 de mayo de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (128)
Al
final de la temporada, por lo tanto, podríamos sumar el número total de
horas de cada avispa gastados en episodios de cavado de madrigueras, y
también el número total de horas de cada avispa gastados en episodios
de ocupación de madrigueras. Para el estudio de New Hampshire estas dos cifras fueron 8518,7 horas y 6.747,4 horas, respectivamente. Esto se considera como el tiempo pasado, o invertido, para un rendimiento, y el rendimiento se mide en número de huevos. El
número total de huevos puestos al final de los episodios de cavado de
madrigueras (es decir, por las avispas que habían cavado la madriguera
en cuestión) en toda la población de New Hampshire durante el año de
estudio fue de 82. El número correspondiente para los episodios de entrada en
madrigueras era de 57 huevos. La tasa de éxito de la subrutina de excavación era, por lo tanto, 82 / 8518,7 = 0,96 huevos por 100 horas. La tasa de éxito de la subrutina de entrada era de 57 / 6747,4 = 0,84 huevos por 100 horas. Estas puntuaciones de éxito se promedian entre todos los individuos que utilizaron las dos subrutinas. En
lugar de contar el número de huevos puestos en su vida por una avispa
individual -el equivalente de medir el rendimiento de trigo de cada uno
de los diez campos en la analogía- contamos el número de huevos puestos 'por' la subrutina de excavación (o entrada) por unidad de duración de la subrutina.
Hay otro aspecto por el que nos habría sido difícil este análisis si hubiéramos insistido en pensar en términos de éxito individual. Con el fin de resolver la ecuación para predecir la frecuencia de equilibrio de entradas, teníamos que tener estimaciones empíricas de los beneficios esperados de cada uno de los cuatro 'desenlaces' (abandona, permanece sola, se le une, se une). Obtuvimos puntuaciones del beneficio para los cuatro resultados de la misma manera como obtuvimos puntuaciones del éxito para cada una de las dos estrategias, cavar y ocupar. Promediamos sobre todos los individuos, dividiendo el número total de huevos puestos en cada resultado por el tiempo total gastado en episodios que terminaron en ese resultado. Como la mayoría de los individuos experimentan los cuatro resultados en diferentes momentos, no está claro cómo podríamos haber obtenido las estimaciones necesarias de beneficios por resultado si hubiéramos pensado en términos de éxito individual.
Observe el papel importante del tiempo en el cálculo del 'éxito' en las subrutinas de excavación y de entrada (y del beneficio dado por cada resultado). El número total de huevos puestos 'por' la subrutina de excavación es una mala medida de éxito hasta que se ha dividido por el tiempo dedicado a la subrutina. El número de huevos puestos por las dos subrutinas podría ser igual, pero si los episodios de cavado son en promedio dos veces más que los episodios de ocupación, la selección natural probablemente favorecería ocupar. De hecho, fueron puestos bastantes más huevos 'por' la subrutina de cavado que por la de ocupación, pero correspondientemente se dedicó más tiempo a la subrutina de cavado, por lo que las tasas globales de éxito de las dos eran aproximadamente iguales. Nótese también que no especificamos si el tiempo extra dedicado a la excavación se explica por un mayor número de avispas {129} cavando, o por cada episodio de excavación que dure más. La distinción puede ser importante para algunos propósitos, pero no importa para el tipo de análisis económico que emprendimos.
viernes, 13 de mayo de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (127)
En
cualquier caso, este método de dividir las avispas en clases presupone
que hay alguna variación consistente entre avispas en la
tendencia a cavar. La {127} teoría no da ninguna razón particular para esperar que debiera haber tal variación. De
hecho, la analogía con la teoría de la proporción de sexos acabada de
mencionar da motivos favorables para esperar que las avispas no deberían
variar en la probabilidad de cavar. De
acuerdo con esto, una prueba estadística sobre los datos reales no reveló
pruebas de variación interindividual en la tendencia a cavar. Incluso
si hubiera alguna variación individual, el método de comparar el éxito
de individuos con diferentes valores de p habría sido tosco y poco sensible para la comparación de las tasas de éxito de excavación y entrada. Esto puede verse con una analogía.
Un agricultor desea comparar la eficacia de dos fertilizantes, A y B. Toma diez campos y divide cada uno de ellos en un gran número de pequeñas parcelas. Cada parcela se trata, al azar, ya sea A o B, y el trigo se siembra en todas las parcelas de todos los campos. Ahora, ¿cómo debe comparar los dos fertilizantes? La forma más sensible es tomar los rendimientos de todas las parcelas tratadas con A y compararlos con los rendimientos de todas las parcelas tratadas con B, en los diez campos. Pero hay otra manera, mucho más tosca. Sucede que en la asignación aleatoria de los fertilizantes a las parcelas, algunos de los diez campos recibieron una cantidad relativamente grande de fertilizante A, mientras que a otros se les dio una cantidad relativamente grande de B. El agricultor podría, entonces, trazar el rendimiento global de cada uno de los diez campos contra la proporción del campo que fue tratado con fertilizantes A en lugar de B. Si hay una diferencia muy pronunciada de calidad entre los dos fertilizantes, este método ya podría mostrarla, pero es mucho más probable que la diferencia se enmascarara. El método de comparación de los rendimientos de los diez campos sería eficiente sólo si la varianza entre los campos es muy alta, y no hay ninguna razón particular para esperar que lo sea. En la analogía, los dos fertilizantes representan la excavación y la entrada. Los campos son las avispas. Las parcelas son los episodios de tiempo que las avispas individuales dedican ya sea a cavar o a entrar. El método tosco de comparar la excavación y la entrada es trazar el éxito en la vida de las avispas individuales contra su proporcional tendencia de excavación. La forma más sensible es la que realmente hemos empleado.
Hicimos un inventario detallado y exhaustivo del tiempo dedicado por cada avispa en cada madriguera con la que se asoció. Dividimos la vida adulta de cada hembra individual en episodios consecutivos de duración conocida, siendo designado un episodio de excavación si la avispa en cuestión comenzó su asociación con la madriguera cavándola. De lo contrario, se designó un episodio de entrada. El final de cada episodio era señalado por la avispa al dejar el nido por última vez. Este instante también fue tratado como el inicio del siguiente episodio del nido, incluso aunque el próximo sitio del nido, en ese momento, aún no se hubiera elegido. Es decir, en nuestra contabilidad de tiempo, el tiempo de búsqueda de una nueva madriguera para entrar, o la búsqueda de un lugar para cavar una nueva madriguera, fue designado retroactivamente como tiempo dedicado a ese nuevo {128} nido. Se añadió al tiempo posteriormente 'consumido' en aprovisionamiento de la madriguera con catídidos, en lucha contra otras avispas, alimentación, dormir, etc., hasta que la avispa dejó la nueva madriguera por última vez.
viernes, 6 de mayo de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (126)
La cuestión por la que cuento esta historia en el presente libro por fin ha llegado. Quiero
afirmar que habríamos tenido dificultades para hacer esta investigación
si hubiéramos pensado en términos de éxito individual, en lugar de en
términos de éxito de estrategia (programa) promedio de todos los individuos. Si
hubiera ocurrido que la EEE mixta se situara al final del polimorfismo
equilibrado del continuo, tendría sentido, de hecho, preguntarse algo
como lo siguiente. ¿El éxito de las avispas que cavan es igual al de las que entran? Habríamos clasificado las avispas en cavadoras u ocupadoras, y comparado el éxito en la puesta de huevos de la vida útil total de los individuos de los dos
tipos, prediciendo que las dos puntuaciones de éxito deberían ser iguales.
Pero, como hemos visto, estas avispas no son polimórficas. Cada individuo a veces cava y a veces entra.
Podría pensarse que habría sido fácil hacer algo como lo siguiente. Clasificar todos los individuos que entraron con una probabilidad de menos de 0,1, los que entraron con una probabilidad entre 0,1 y 0,2, aquellos con una probabilidad entre 0.2 y 0.3, entre 0.3 y 0.4, 0.4 y 0.5, etc. Entonces comparar los éxitos reproductivos de las avispas durante el curso de su vida en las diferentes clases. Pero suponiendo que hiciéramos esto, ¿qué prediría exactamente la teoría de la EEE? Un primer pensamiento apresurado es que aquellas avispas con un valor de p cerca del equilibrio p* deberían disfrutar de una puntuación de éxito mayor que las avispas con algún otro valor de p: el gráfico de éxito contra p debería alcanzar un máximo en un punto 'óptimo' en p*. Pero p* no es realmente un valor óptimo, es un valor evolutivamente estable. La teoría espera que, cuando se alcanza p* en la población como un todo, cavar y ocupar deben tener el mismo éxito. En equilibrio, por tanto, esperamos que no haya correlación entre la probabilidad de cavar de una avispa y su éxito. Si la población se desvía del equilibrio en la dirección de un exceso de ocupación, la regla de elección 'óptima' se convierte en 'cavar siempre' (no 'cavar con probabilidad p*'). Si la población se desvía del equilibrio en la otra dirección, la política 'óptima' es 'ocupar siempre'. Si la población fluctúa al azar alrededor del valor de equilibrio, la analogía con la teoría de la proporción de sexos sugiere que en el largo plazo las tendencias genéticas para adoptar exactamente el valor de equilibrio, p*, se ven favorecidas por la tendencia a adoptar cualquier otro valor constante de p (Williams 1979). Pero en un año esta ventaja no es particularmente probable que sea evidente. La expectativa razonable de la teoría es que no debe haber ninguna diferencia significativa en las tasas de éxito entre las clases de avispas.
Podría pensarse que habría sido fácil hacer algo como lo siguiente. Clasificar todos los individuos que entraron con una probabilidad de menos de 0,1, los que entraron con una probabilidad entre 0,1 y 0,2, aquellos con una probabilidad entre 0.2 y 0.3, entre 0.3 y 0.4, 0.4 y 0.5, etc. Entonces comparar los éxitos reproductivos de las avispas durante el curso de su vida en las diferentes clases. Pero suponiendo que hiciéramos esto, ¿qué prediría exactamente la teoría de la EEE? Un primer pensamiento apresurado es que aquellas avispas con un valor de p cerca del equilibrio p* deberían disfrutar de una puntuación de éxito mayor que las avispas con algún otro valor de p: el gráfico de éxito contra p debería alcanzar un máximo en un punto 'óptimo' en p*. Pero p* no es realmente un valor óptimo, es un valor evolutivamente estable. La teoría espera que, cuando se alcanza p* en la población como un todo, cavar y ocupar deben tener el mismo éxito. En equilibrio, por tanto, esperamos que no haya correlación entre la probabilidad de cavar de una avispa y su éxito. Si la población se desvía del equilibrio en la dirección de un exceso de ocupación, la regla de elección 'óptima' se convierte en 'cavar siempre' (no 'cavar con probabilidad p*'). Si la población se desvía del equilibrio en la otra dirección, la política 'óptima' es 'ocupar siempre'. Si la población fluctúa al azar alrededor del valor de equilibrio, la analogía con la teoría de la proporción de sexos sugiere que en el largo plazo las tendencias genéticas para adoptar exactamente el valor de equilibrio, p*, se ven favorecidas por la tendencia a adoptar cualquier otro valor constante de p (Williams 1979). Pero en un año esta ventaja no es particularmente probable que sea evidente. La expectativa razonable de la teoría es que no debe haber ninguna diferencia significativa en las tasas de éxito entre las clases de avispas.
viernes, 29 de abril de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (125)
La
probabilidad de que una decisión de ocupar conduzca a algún resultado
particular, como el deseado de 'quedarse sola', depende de la
frecuencia global en la población de las decisiones de ocupar. Si
se está dando una gran cantidad de ocupaciones en la población, el
número de madrigueras abandonadas disponibles disminuye, y aumentan las
posibilidades de que una avispa que decida ocupar se encuentre en la posición no deseada de unirse a una ocupante. Nuestro
modelo nos permite tomar cualquier valor dado de p, la frecuencia
global de excavación en la población, y predecir la probabilidad de
que un individuo que decida cavar, o uno que decida ocupar, terminará ese episodio en cada uno de los cuatro resultados. Por tanto, el saldo medio de una avispa que decide cavar puede
predecirse para cualquier frecuencia de cavado que, frente a
la de ocupación, presente la población en su conjunto. Es
simplemente la suma, sobre los cuatro resultados, del saldo esperado
dado por cada resultado, multiplicado por la probabilidad de que una
avispa que cave termine con ese resultado. La
suma equivalente puede calcularse para una avispa que decida ocupar, otra vez para cualquier frecuencia dada de cavar frente a
ocupar en la población. Por
último, haciendo ciertos supuestos adicionales plausibles que se
enumeran en el documento original, se resuelve una ecuación para hallar
la frecuencia de cavar en la población en la que el beneficio
esperado promedio de una avispa que cava es exactamente igual al
beneficio esperado promedio de una avispa que ocupa. Esa es nuestra frecuencia de equilibrio predicha, que podemos comparar con la frecuencia observada en la población silvestre. Nuestra
expectativa es que la población real debe asentarse o en la
frecuencia de equilibrio o en el proceso de evolucionar
hacia la frecuencia de equilibrio. El
modelo también predice la proporción de avispas que terminan en
cada uno de los cuatro resultados de equilibrio, y estas cifras
también se pueden comprobar con los datos observados. El equilibrio del modelo es teóricamente estable en lo que predice que
las desviaciones del equilibrio serán corregidas por la selección
natural.
Brockmann estudió dos poblaciones de avispas, una en Michigan y otra en New Hampshire. Los resultados fueron diferentes en las dos poblaciones. En Michigan el modelo falló en predecir los resultados observados, y llegamos a la conclusión de que era absolutamente inaplicable a la población de Michigan, por razones desconocidas, como se explica en el documento original (¡el hecho de que la población de Michigan se ha extinguido es probablemente fortuito!). La población de New Hampshire, por otro lado, encajó convincentemente en las predicciones del modelo. La frecuencia de equilibrio predicho de entrada {126} era 0,44, y la frecuencia observada fue de 0,41. El modelo también predijo con éxito la frecuencia de cada uno de los cuatro 'desenlaces' en la población de New Hampshire. Y tal vez lo más importante, el saldo medio resultante de las decisiones de cavar no difirió significativamente del saldo medio resultante de las decisiones de ocupar.
Brockmann estudió dos poblaciones de avispas, una en Michigan y otra en New Hampshire. Los resultados fueron diferentes en las dos poblaciones. En Michigan el modelo falló en predecir los resultados observados, y llegamos a la conclusión de que era absolutamente inaplicable a la población de Michigan, por razones desconocidas, como se explica en el documento original (¡el hecho de que la población de Michigan se ha extinguido es probablemente fortuito!). La población de New Hampshire, por otro lado, encajó convincentemente en las predicciones del modelo. La frecuencia de equilibrio predicho de entrada {126} era 0,44, y la frecuencia observada fue de 0,41. El modelo también predijo con éxito la frecuencia de cada uno de los cuatro 'desenlaces' en la población de New Hampshire. Y tal vez lo más importante, el saldo medio resultante de las decisiones de cavar no difirió significativamente del saldo medio resultante de las decisiones de ocupar.
viernes, 22 de abril de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (124)
Lo
que precipitaba el abandono del nido por el propietario original
parecía normalmente ser un inconveniente temporal, y un nido abandonado
constituía un recurso deseable que era pronto utilizado por otra
avispa. Una avispa que entra en una madriguera abandonada se ahorra los costes asociados con la excavación de una. Por otra parte, se corre el riesgo de que la madriguera en la que se entra no se haya abandonado. Todavía puede contener al propietario original, o puede contener otra avispa ocupadora que llegó primero. En cualquiera de estos casos, la avispa que entra se expone a un alto
riesgo de una lucha costosa, y a un alto riesgo de que ella no sea la que ponga el huevo al final de un período costoso de aprovisionar
el nido.
Desarrollamos y probamos un modelo matemático (Brockmann, Grafen y Dawkins 1979) que distingue cuatro resultados o destinos diferentes que podrían acontecer a una avispa en cualquier episodio de anidación particular.
1 Podría verse obligada a abandonar el nido, por ejemplo por un ataque de hormigas.
2 Podría terminar sola, la única responsable del nido.
3 Podría unírsele una segunda avispa.
4 Podría unirse a una avispa ya instalada.
Los resultados de 1 a 3 podrían ser el resultado de una decisión inicial de cavar una madriguera. Las resultados de 2 a 4 podrían ser el resultado de una decisión inicial de ocupar. Los datos de Brockmann nos permitieron medir, en términos de probabilidad de poner un huevo por unidad de tiempo, los 'beneficios' relativos asociados a cada uno de estos cuatro resultados. Por ejemplo, en una población estudiada en Exeter, New Hampshire, el resultado 4, 'unión', tuvo una puntuación de rentabilidad de 0,35 huevos por 100 horas. Esta puntuación se obtuvo de media sobre todas las ocasiones en que las avispas terminaron en ese resultado. Para calcularlo, simplemente añadimos el número total de huevos puestos por las avispas que, por el motivo que fuera, se habían unido a una avispa ya instalada, y dividido por el tiempo total dedicado por las avispas en nidos a los que se habían unido. La puntuación correspondiente a las avispas que comenzaron solas, pero a las que se les unieron posteriormente otras avispas, fue 1.06 huevos por cada 100 horas, y la de las avispas que se quedaron solas fue de 1.93 huevos por 100 horas.
Si una avispa pudiera controlar con cuál de los cuatro resultados acabaría, debería 'preferir' terminar sola, puesto que este resultado llevó a la tasa de rentabilidad más alta, pero ¿cómo podría conseguirlo? Un supuesto clave de nuestro modelo era que los cuatro resultados no correspondían a las decisiones que estaban disponibles para una avispa. Una avispa puede 'decidir' cavar o entrar. No puede decidir que se le asocie otra o estar sola más de lo que un hombre puede decidir no tener cáncer. Estos son resultados que dependen de circunstancias fuera del control del individuo. En este caso dependen de lo que hacen las otras avispas en la población. {125} Pero al igual que un hombre puede reducir estadísticamente sus posibilidades de contraer cáncer tomando la decisión de dejar de fumar, del mismo modo la 'tarea' de una avispa es tomar la única decisión abierta a ella -cavar u ocupar- de tal manera que se maximice su posibilidades de acabar en un resultado deseable. Más estrictamente, buscamos el valor estable de p, p*, de manera que cuando p* de las decisiones en la población son decisiones de cavar, ningún gen mutante que conduzca a la adopción de cualquier otro valor de p será favorecido por la selección natural.
viernes, 15 de abril de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (123)
Dije que los dos extremos estaban unidos por un continuo. Quiero
decir que la frecuencia de la población estable de excavación, p* (70
por ciento o el que sea), se podría lograr por cualquiera de un gran
número de combinaciones de estrategias individuales puras y mixtas. Puede
haber una amplia distribución de los valores en los sistemas nerviosos
individuales en la población, incluyendo cavadoras puras y ocupadoras puras. Pero,
siempre que la frecuencia total de la excavación en la población sea
igual al crítico valor p*, seguiría siendo cierto que cavar y ocupar son igualmente exitosos, y la selección natural no actuaría para
cambiar la frecuencia relativa de los dos subrutinas en la próxima generación. La población estaría en un estado evolutivamente estable. La analogía con la teoría de Fisher (1930a) de equilibrio en la proporción de sexos será clara.
Pasando de lo concebible a la real, los datos de Brockmann demuestran de manera concluyente que estas avispas no son polimórficas en ningún sentido simple. Los individuos a veces cavaron y a veces ocuparon. Ni siquiera pudimos detectar ninguna tendencia estadística por la que los individuos se especialicen en cavar u ocupar. Evidentemente, si la población de avispas está en un estado mixto evolutivamente estable, se encuentra lejos del extremo polimorfismo del continuo. Si es en el otro extremo -todos los individuos ejecutan el mismo programa estocástico- o si existe alguna mezcla más compleja de los programas individuales puros y mixtos, no lo sabemos. Es uno de los mensajes centrales de este capítulo que no necesitábamos saber para nuestro propósito de investigación. Puesto que nos abstuvimos de hablar de éxito individual, sino que en su lugar pensamos en el éxito de la subrutina como media de todos los individuos, hemos sido capaces de desarrollar y probar un modelo exitoso de la EEE mixta que deja abierta la pregunta de dónde se sitúan nuestras avispas a lo largo del continuo. Volveré sobre este punto tras exponer algunos hechos pertinentes y después de esbozar el modelo en sí.
Cuando una avispa cava una madriguera, puede quedarse y provisionarla, o puede abandonarla. Las razones para el abandono de los nidos no siempre eran evidentes, pero incluían la invasión de hormigas y otros extraños indeseables. Una avispa que se muda a una madriguera que otra ha cavado podría descubrir que la propietaria original todavía está en la residencia. En este caso se dice que se ha unido a la anterior propietaria, y las dos avispas suelen trabajar en el mismo nido durante un tiempo, ambas aportando catídidos independientemente. Alternativamente, la avispa ocupadora puede tener la suerte de dar con un nido que ha sido abandonado por su propietaria original, en cuyo caso lo tiene para ella sola. La evidencia indica que las avispas ocupadoras no pueden distinguir un nido que ha sido abandonado de uno que todavía está ocupado por su propietaria anterior. Este hecho no es tan sorprendente como pueda parecer, ya que ambas avispas pasan la mayor parte de su tiempo a la caza, por lo que dos {124} avispas que 'comparten' el mismo nido rara vez se encuentran. Cuando se encuentran, luchan, y en todo caso sólo una de ellas tiene éxito en poner un huevo en el nido en disputa.
viernes, 8 de abril de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (122)
Hay en teoría dos clases de EEE mixtas, o más bien dos extremos con un continuo entre ellas. El primer extremo es un polimorfismo equilibrado. En
este caso, si queremos usar las iniciales 'EEE', la E inicial debe ser
pensada como el estado de la población, más que como una
estrategia del individuo. Si
se concreta esta posibilidad, habría dos clases distintas de avispas, las cavadoras y las ocupadoras, que tenderían a ser igual de exitosas. Si no fueran igualmente exitosas, la selección natural tendería a eliminar la menos exitosa de la población. Es
demasiado esperar que, por pura coincidencia, los costes y beneficios
netos de cavar se equilibren exactamente con los costes y
beneficios netos de ocupar. Más bien, estamos invocando la selección dependiente de la frecuencia. Postulamos una proporción de equilibrio crítico de cavadoras, p*, en la que los dos tipos de avispas tienen el mismo éxito. Entonces,
si la proporción de cavadoras en la población se encuentra por debajo
de la frecuencia crítica, las excavadoras serán favorecidas por la
selección, mientras que si se eleva por encima de la frecuencia crítica, las ocupadoras serán favorecidas. De esta manera la población se situaría alrededor de la frecuencia de equilibrio.
Es fácil pensar en razones plausibles por las que el beneficio podría así ser dependiente de la frecuencia. Es evidente que, dado que las nuevas madrigueras llegan a existir sólo cuando las cavadoras cavan, cuantas menos cavadoras haya en la población, más fuerte será la competencia por las madrigueras entre las ocupadoras, y menor el beneficio para una ocupadora típica. Por el contrario, cuando las cavadoras son muy numerosas, las madrigueras disponibles abundan y las ocupadoras tienden a prosperar. Pero, como he dicho, el polimorfismo dependiente de la frecuencia es sólo uno de los extremos de un continuo. Pasamos ahora al otro extremo.
En el otro extremo del continuo no hay polimorfismo entre individuos. En el estado estable todas las avispas obedecen el mismo programa, pero ese programa es en sí mismo una mezcla. Cada avispa está obedeciendo la instrucción, 'Cava con probabilidad p, ocupa con probabilidad I-p'; por ejemplo, 'Cavar en el 70 por ciento de las ocasiones, ocupar en el 30 por ciento de las ocasiones'. Si esto se considera como un 'programa', quizá podríamos hacer referencia a la excavación y a la ocupación en sí mismas como 'subrutinas'. Cada avispa está equipada con dos subrutinas. Está programada para elegir una u otra en cada ocasión con una probabilidad característica, p.
Aunque aquí no hay polimorfismo de cavadoras y ocupadoras, puede seguirse dando algo matemáticamente equivalente a la selección dependiente de la frecuencia. Así es cómo funcionaría. Al igual que antes, hay una frecuencia de población crítica de cavar, p*, en la que ocupar produciría exactamente la misma 'rentabilidad' que cavar. p* es, entonces, la probabilidad de excavación evolutivamente estable. {123} Si la probabilidad estable es 0.7, los programas que instruyen avispas a seguir una regla diferente, digamos 'Cava con probabilidad 0,75', o 'Cava con probabilidad 0,65', lo haría menos bien. Hay toda una familia de 'estrategias mixtas' de la forma 'Cava con probabilidad p, ocupa con probabilidad I-p' y sólo una de ellas es la EEE.
viernes, 1 de abril de 2016
Capítulo 7.- ¿Avispa Egoísta o Estrategia Egoísta? (121)
Lo que Maynard Smithha hecho, junto con Price y Parker (Maynard Smith & Price 1973; Maynard Smith & Parker 1976), es tomar la teoría matemática de los juegos y resolver el aspecto crucial en el que la teoría debe ser modificada para adaptarse al propósito darwinista. El concepto de EEE, una estrategia que funcione relativamente bien contra copias de sí misma, es el resultado. Ya he hecho dos intentos de promover la importancia del concepto de EEE y explicar su amplia aplicabilidad en etología (Dawkins 1976a, 1980), y no voy a repetirme innecesariamente aquí. Aquí mi objetivo es el desarrollo de la relevancia de esta forma de pensar para el tema del presente libro, el debate sobre el nivel en el que actúa la selección natural. Comenzaré haciendo un recuento de una parte específica de la investigación que utiliza el concepto de EEE. Todos los hechos que expondré son de las observaciones de campo de la Dra. Jane Brockmann, informadas en detalle en otra parte, y que mencioné brevemente en el capítulo 3. Para poder relacionarla con el mensaje de este capítulo, antes tengo que dar una breve reseña de la propia investigación.
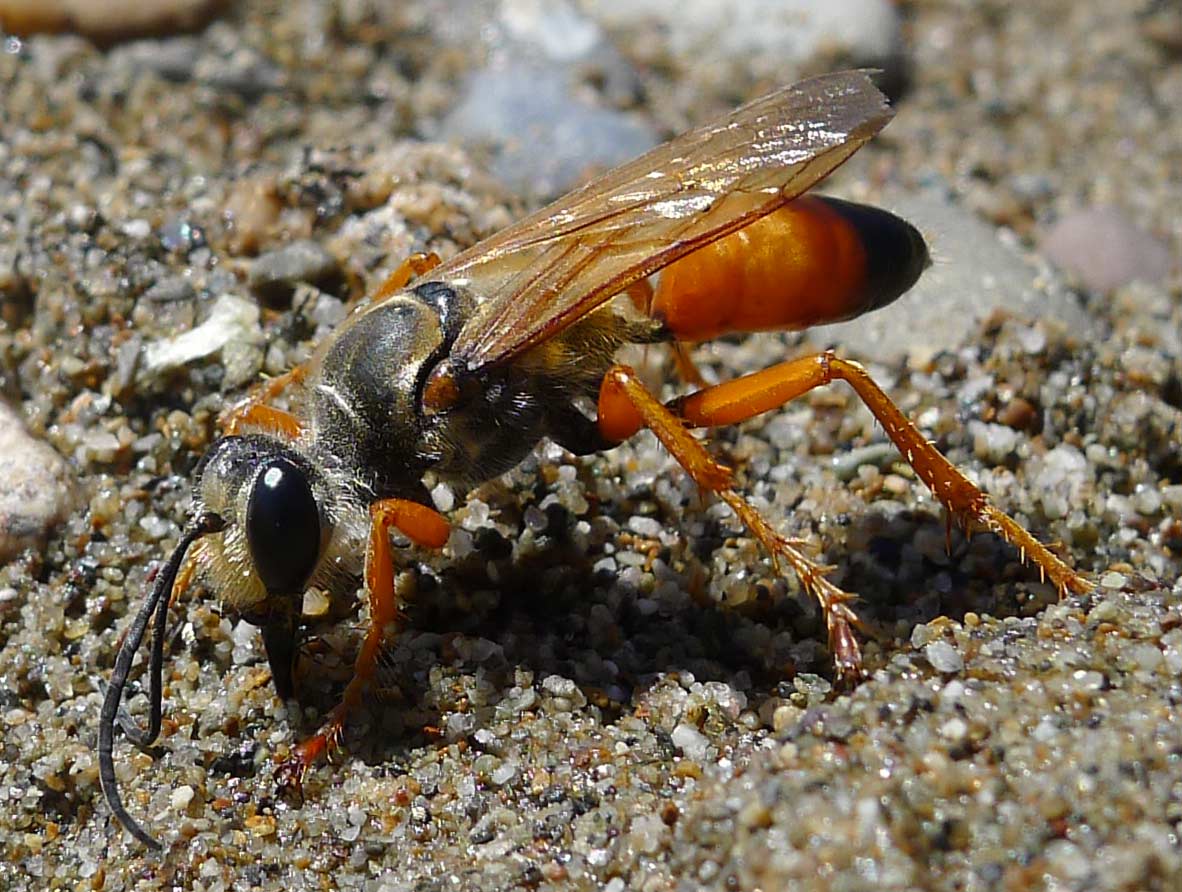 |
| Sphex Ichneumoneus. Fuente. |
 |
| Sphex Ichneumoneus aprovisionando su nido con un catídido. Fuente: Stephen Cresswell. |
Si la primera posibilidad fuera correcta, todas las avispas pueden programarse con la misma {122} regla condicional: 'Si X es verdadera, cavar. De lo contrario, ocupar'; por ejemplo, 'si ocurre que eres una pequeña avispa, cava. De lo contrario, usa tu tamaño superior para ocupar el nido de otra avispa'. Pero no hemos podido encontrar ninguna evidencia para un programa condicional de éste o de cualquier otro tipo. En su lugar, nos convencimos de que la segunda posibilidad, la EEE mixta, se adaptaba a los hechos.
Suscribirse a:
Entradas (Atom)